The Ulutas Medical Journal · ISSN 2149-0430 (印刷版), 2149-388X (在线版) · https://www.ulutasmedicaljournal.com/?mno=133517
综述 · 开放获取
微囊素-LR诱导心肌毒性对哺乳动物的原生影响
标题、摘要和全文为机器翻译。 英文原文
- Biochemistry Laboratory, Department of Zoology, Dr. Harisingh Gour Vishwavidyalaya, Sagar, Madhya Pradesh, India-470003 ROR
- 开放获取
- CC BY-NC 4.0
- ORCID
- 资助
- 伦理批准
- 数据可用性
摘要
富营养化和气候变化带来了令人厌恶的氰菌开花,这已成为全球公共卫生问题。 在水体中发现的最危险的氰诺毒素是微囊素(MC),这是氰菌代谢的副产物. 有几项研究表明,除了肝脏外,心脏可能是MCs中毒的另一个靶器官. 最近的研究显示,MC接触与心肌毒性之间有着明确的联系,对人类心血管健康构成威胁。 心血管系统包括心脏的所有组织,细胞,血液和血管组织,可以毫不动摇地受到MCs的影响,导致心血管系统结构和/或功能异常. 本次审查得出结论,MC心肌毒性可能与蛋白质磷酸酶抑制和收缩单元,产生收缩力,细胞间交叉蛋白的作用,血管炎信号途径在心肌细胞中的作用有关.
关键词
全文
全文为机器翻译;以英文原文为准。 英文原文
导言
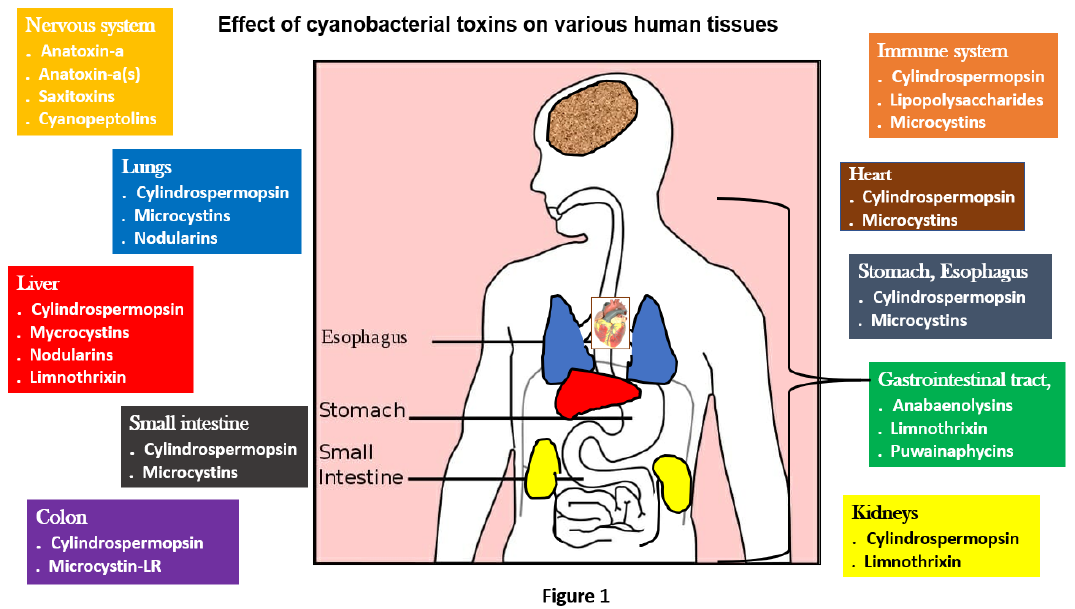
Cyanobacteria有着悠久的进化历史,它允许制定各种适应和战略,使它们在世界许多生态系统中取得成功. (1)这些改造使得氰菌物种能够超越其他藻类物种,并在某些条件下主导浮游植物群落,导致有害藻类开花(CyanoHABs). 全世界淡水、咸水和海洋水体中都有青霉菌。 毒素(cyanotoxin)是由一些氰菌物种产生的,已经发现对包括心脏在内的许多组织有害(图1)。 微囊毒素被认为是这些链霉素中最常见和最有害的。 (2)氰诺毒素浓缩在水生生物体内,通过各种营养水平在食物链上传递,对人类和动物造成健康问题 (3)单环肽微囊素(MCs)是最普遍、最广泛分散、最有毒和最难被氰菌开花所消除的。 微囊孢子、阿纳巴埃纳、阿纳巴诺普西、奥西利亚托里亚和诺斯托克生产链霉素,这是一种环状七聚丙烯毒素。 (4)氨基酸、肽序列、羟基化、缩化和毒性的改变导致100多种MC异构物的确定 (5)微囊素-Leucine arginine(MC-LR)是微囊素家族中最丰富和有毒的成员,天然水域微囊素总量的46-99.8%存在于这些微囊素形态中. 可溶于水,在去离子化或过滤水中稳定,即使在温度达300 °C时也稳定,这些都是MC-LR的特征. 世界卫生组织(卫生组织)为人类的饮用水和洗澡用水设定了1微克/升的暂时限值。 (6) 通过抑制蛋白质磷酸酶1和2A,MCs起到肝毒素和肿瘤促进作用. (2)蛋白质磷酸酯酶抑制与细胞毒性和肿瘤促进作用有关,与胃炎、肝细胞癌、肺癌、肾衰竭、心血管疾病和脾病有关 (7–9)全世界水生生境中,富营养化引起的氰菌开花和氰诺毒素污染越来越普遍 (10)人类可以通过多种方式与MC接触. 其中包括饮用被污染的水、接触、呼吸、食用被污染的食物、服用含有藻类的营养补充剂和接受血液透析。 (11)。 。 。
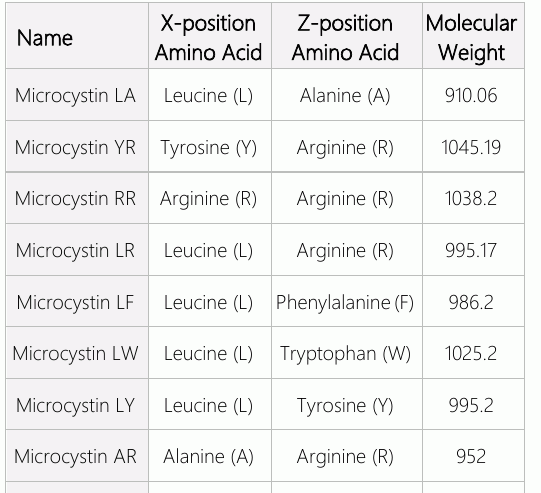
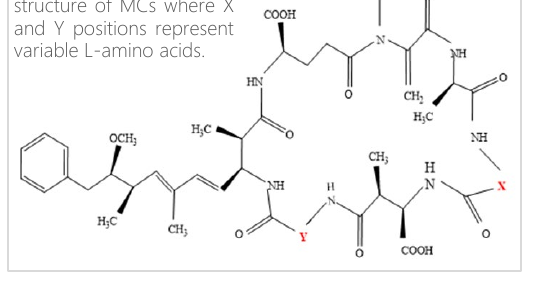
微囊霉素是研究最广泛的亚甲诺毒素之一. 微囊素是一种环状分子,有七个肽链接的氨基酸,末端氨基酸缩合. (12). 最危险的微囊素变种之一可能是微囊素-LR(MC-LR). 蛋白质磷酸酶1和2A(PP1和PP2A)与盐碱/硫磷的催化核心结合. (13)MC是单环性肽毒,有100多种不同形式 (14)7个氨基酸在MC的1000Da结构中被排列成环状,每个环都有明显的侧链(ADA组). 每个品种的名称来源于两个可变位置,这些位置总是由L-氨基酸填充(如在MC-LR的情况下是L-leucine和L-arginine). 各种变异的极性各不相同;例如,聚氯乙烯-LF(含苯甲胺)和聚氯乙烯-LW(含三聚氰胺)含有疏水性氨基酸残基,而聚氯乙烯-LR更富水性。 (15). 许多MC变体是由于X和Y位置的氨基酸变化,如图2所示. MC变体最为普遍,每个变体都含有单曲(L)、rg(R)和 (Y)的明显组合(表1) (16)Adda moyoty对MC活动至关重要,存在于所有变体中 (17)由于蛋白质磷酸酯(PP1)和蛋白质磷酸酯(PP2A)的抑制,MCs引起毒性. (18)在动物和人类中,已发现致癌物具有肝毒性 (19)然而,有证据表明,MC影响到结肠、肺、心脏、大脑、睾丸和肾脏。 (20–24)。 。 。
心肌细胞:心脏收缩单元
心脏能够不间断地不间断地泵动,在放松(二聚体)和收缩(二聚体)之间交替,从而能够完成维持血液通过血管系统(二聚体)稳定循环的任务. (25). 心肌细胞,占心肌细胞的30%,与心肌纤维化,内皮细胞和皮质细胞一起,是紧密同步的,这使得它们能够以这种节奏收缩. 由于体积巨大,心肌细胞被认为占心肌体积的85%,而只占细胞种类的30%。 (26). 被称为心肌细胞的专用肌肉细胞是由肌动膜组成的,其中包括称为sarcomeres的肌动膜的重复规律. Sarcomeres的主要成分是强烈的肌髓丝和薄的动作丝,它们通过相互滑翔来缩小斜纹长度. 这是导致心肌细胞收缩的多丝细胞 协调缩短的基础 这是肌肉收缩的滑动丝状假说的一部分 (27)。 。 。
产生收缩力:刺激-收缩结合
心肌细胞具有高度专业化的T细胞网络,允许在细胞内通过,协助Ca。2+ (韩语) 通过 L 类型 C 输入2+ (韩语) 由于膜去极化而打开的通道(LTCC). Sarcoplastic reticulum 开口结果 Ca的释放量要高得多2+ (韩语) 当RyRs(ryanodine受体)通过外卡激活时进入细胞.2+ (韩语) 约束 (28). 称为钙引起的钙释放(CICR)的程序导致自由细胞Ca急剧上升。2+ (韩语)激活肌炎并导致心脏收缩 (29)抑制剂Troponin I最初是因Ca而释放的2+ (韩语) 与Troponin C绑定,引起过敏性转变,暴露了作用丝和肌素绑定点. 在ATP水解后,厚的丝状肌髓头可以建立连接薄丝的结缔地点的跨桥,并通过相互滑过来执行强力收缩,缩小锯齿. 当心肌在分泌阶段放松时 心脏可以重新装血 (28)。 ca 语2+ (韩语) 从Troponin C分解出来,或被交换一个卡的钠-钙交换器从细胞中除去。2+ (韩语) 为3个钠离子(Na+)或再吸收成砂质复基通过砂质复基Ca.2+ (韩语)ATPase (SERCA) (英语). 心肌放松和跨桥形成因自由卡的减少而受到抑制2+ (韩语) (30) 任何对心脏激发-收缩耦合过程的严格调控的中断,涉及协调离子运动,钙释放和跨桥形成,都会导致心肌收缩和心脏节律的紊乱,从而损害心脏在整个体内泵血的能力. 大多数心肌ECM蛋白是由心肌纤维细胞产生的,对于心脏的重塑和维护细胞外基质(ECM)也是必不可少的. 纤维爆炸可以影响心肌细胞的麻黄质,因为它们接近心肌细胞,并具有改变ECM组成的力量. (31)。 。 。
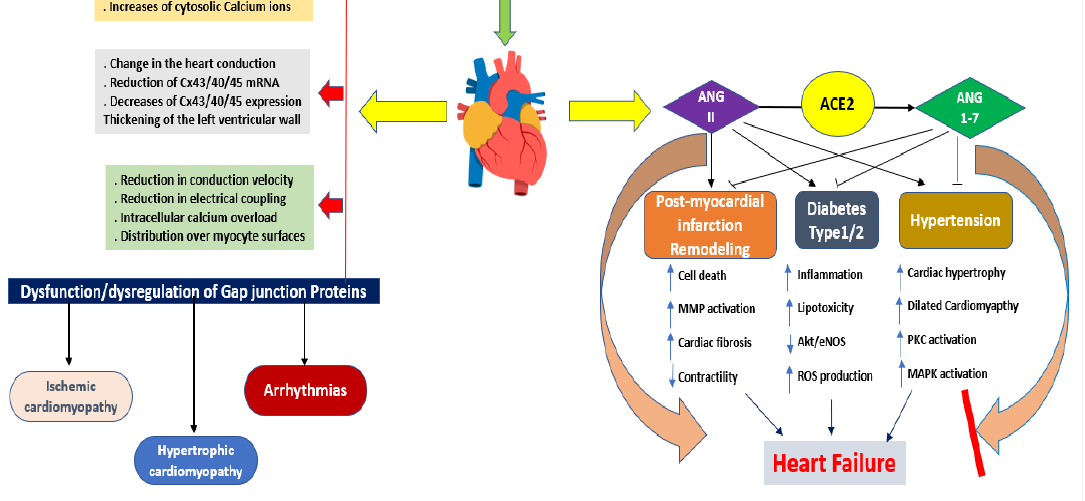
组织受损后,心脏纤维素也可能参与接收和反应来自附近心肌细胞的求救信号. 心肌细胞的高新陈代谢要求 主要是通过向心血管内皮细胞 提供营养和氧气来满足 (32)心脏内皮细胞的其他功能包括促进细胞间交流,促进细胞粘合和防止血栓发育. (33)任何伤害都会对心脏萎缩产生不利影响,因为心脏微血管内皮细胞的关键功能将损害向心肌细胞提供的氧气、营养素和生物信号。 研究人员透彻地调查了持续接触致癌杆菌对大鼠心脏组织的影响,长期接触致癌杆菌致癌杆菌有可能对心脏肌肉造成风险。 组织病理学实验揭示了细胞骨骼的变化,包括心肌细胞扩张,细胞交叉断裂,纤维化,非典型核. (34)此外,MC-LR的施药导致心肌细胞扩大,肌肉纤维退化,伴有肌解析,大鼠心脏出现异常核. (35)这些发现已在人体心肺病原性心脏组织中得到证实,其中与萎缩性衰竭和细胞骨骼异常有关。 (36)心与细胞间连接蛋白的作用 同一细胞类型之间的连接和异细胞间连接都发生在间隙连接处,这是在心肌细胞和辅助细胞上发现的一种显著的细胞间连接. 间隙交汇点在所有互相接触的人类细胞中起到通道的作用,使离子和微小分子能够直接在细胞间转移. (37). 分子重量小于1千达,使化合物可以穿透间隙交叉通道。 孔径成型分子的孔霉素类型和电荷决定了材料的渗透性如何. 沟口在心脏中起着关键作用,因为器官需要迅速将氧气和养分从微真空转移到心肌细胞上 (38)心脏的间隙连接为细胞间电流流动创造了渠道,从而可以协调行动的潜在传播。 Connexin(Cx)家族的沟口蛋白对电冲动的快速传播至关重要. Cx43,Cx40和Cx45是心肌节素中表示的主要直肠素,其中Cx43是最常见的 (39)由于Cx43在心脏中的高更替率,监测Cx43退化可能是控制器官在健康和病理状态中间隙交叉交流的战略 (40). 心肌细胞中最常见的间隙交叉蛋白是connexin-43(Cx43),正常动作潜力的传播取决于其存在. (41). 在一些心脏紊乱中,产生间隙交叉通道的连环素分子被耗尽或从间位盘转移到横向细胞边界。 行动潜在传播可能受到干扰,心肌细胞之间的间隙交叉通信有缺陷,可能发展出心律失常,因为协调的电活是心脏同步收缩活动所必需的。 试管纤维化和新出生的突然死亡 与Cx43突变有关 (42)漏洞路口改造是由微囊素引起的,因为疾病心肌的漏洞路口数量和分布不断变化(图3). (43) . Cx43 包含的斑点移动到横向单元格边框,改变端到端间盘(ID)的间隙交叉分布. 正常的、化学的和高营养的左排气管有等大小的牌子,而病理心脏显示的Cx43数量减少40% (44)间隙交汇点的横向化似乎是心肌功能失调的一个关键特征,导致每个ID单位的间隙交汇点面积下降30%至40%。 MC-LR效应被认为是哺乳动物观察到的细胞间隙扩大的原因,它扰乱了微囊,微丝和细胞内链素中间丝. (45). MC与蛋白质磷酸酯相互作用,可以检测心肌. MC的注射是基本过程,根据显示的心肌毒性的复杂程度,它们可以提供信息,说明是否涉及一个问题。 (46)。 。 。
Figu ca
氮氧化物(NO)在心脏生理学中扮演重要角色,而心脏生理学又由酶氮氧化物合成酶(NOS)调节. 心肌氧化物通过开始阳性心肌收缩(心肌收缩性增强),改变心肌内膜细胞Ca来调节血管和心脏功能.2+ (韩语) 运动、挥发、加速通风放松和控制心脏代谢 (47)。这些无合成物通过提高/降低其水平来配合调整效应。 心力衰竭是细胞中断造成的,因为产生过多的NO而失去这种平衡 (48)组织中的高NO与膜脂过氧化有关。 MC-LR经处理的动物的LDH升高可能归因于电子运输链中的能量阻塞,因为NO永久抑制了线粒体电子运输链的I-III和细胞-C-氧化物,减少了细胞呼吸和ATP合成. (49)。 。 。
血管激素信号传递途径在心肌细胞中的作用
在心脏信号化中起重要作用的主要细胞表面受体是G蛋白结合受体(GPCR). GPCR包括血管激素受体,α-和β-肾上腺素受体以及ET1B受体. 通过这些受体的信号可以改变血管基调,收缩力和心率 (50)Serine/threonine kinases,是将磷酸基团添加到血清或血清氨基酸残基中的重要蛋白质基酶,是肾上腺素细胞中大多数信号传导的原因,并导致蛋白质的成形变化. (51)受磷酸化的依赖电压的钙通道的细胞内Ca2+水平较低,这使得船壁更难收缩 (52)蛋白质磷酸盐从靶蛋白质中去除磷酸盐组,通过调制基酶途径减少信号转导 (53). Angiotensin II通过在心血管细胞中与ATR1结合,促进磷脂酶C(PLC)的活性. 这种酶活性将膜磷酸盐水解生成无氧醇. (1, 4, 5)- 三磷酸酯(IP3)和二甲醇(DAG)。 两个细胞内 Ca2+ (韩语) 这些第二位信使(PKC)将细胞内蛋白质进行磷酸化,从而引发生物反应,应对刺激。 ATR1和ATR2是血管素受体(ATR)的2个亚型,这些亚型参与这个信号传递路径,并调解心细胞对血管素II的反应. Angiotensin-II在心血管系统中具有关键的作用,因为它能调节血液流动和血管声调的微小变化,保持器官的充沛. 血管炎II的不良反应,如高血压和心脏过度收缩,可能来自长时间的ATR1激活. (54). 中断这种信号是公认的药理目标,因为随之而来的是心脏和血管系统上的血管素二(图3)。 Angiotensin受体阻断剂(ARB)在治疗凝血性心力衰竭(CHF)方面有帮助,因为它们可以通过防止Agiotensin II吸附到ATR1来阻止心脏的重组和降低血压. (55). 证据支持在心血管系统细胞上表达的RTKs和GPCR可以互相"说"来协调细胞内信号. 通过一种被称为转录的独特的信号传动机制,GPCR可以指挥生长因子受体的信号传动机件,用于其功能. Angiotensin II可以通过转动EGFR直接刺激心肌细胞的扩张,EGFR启动特定的转录途径,控制超活性基因的表达.
根据报告,占心脏细胞体积约40%的心肌细胞在线粒体中特别高 (56)。 。 。
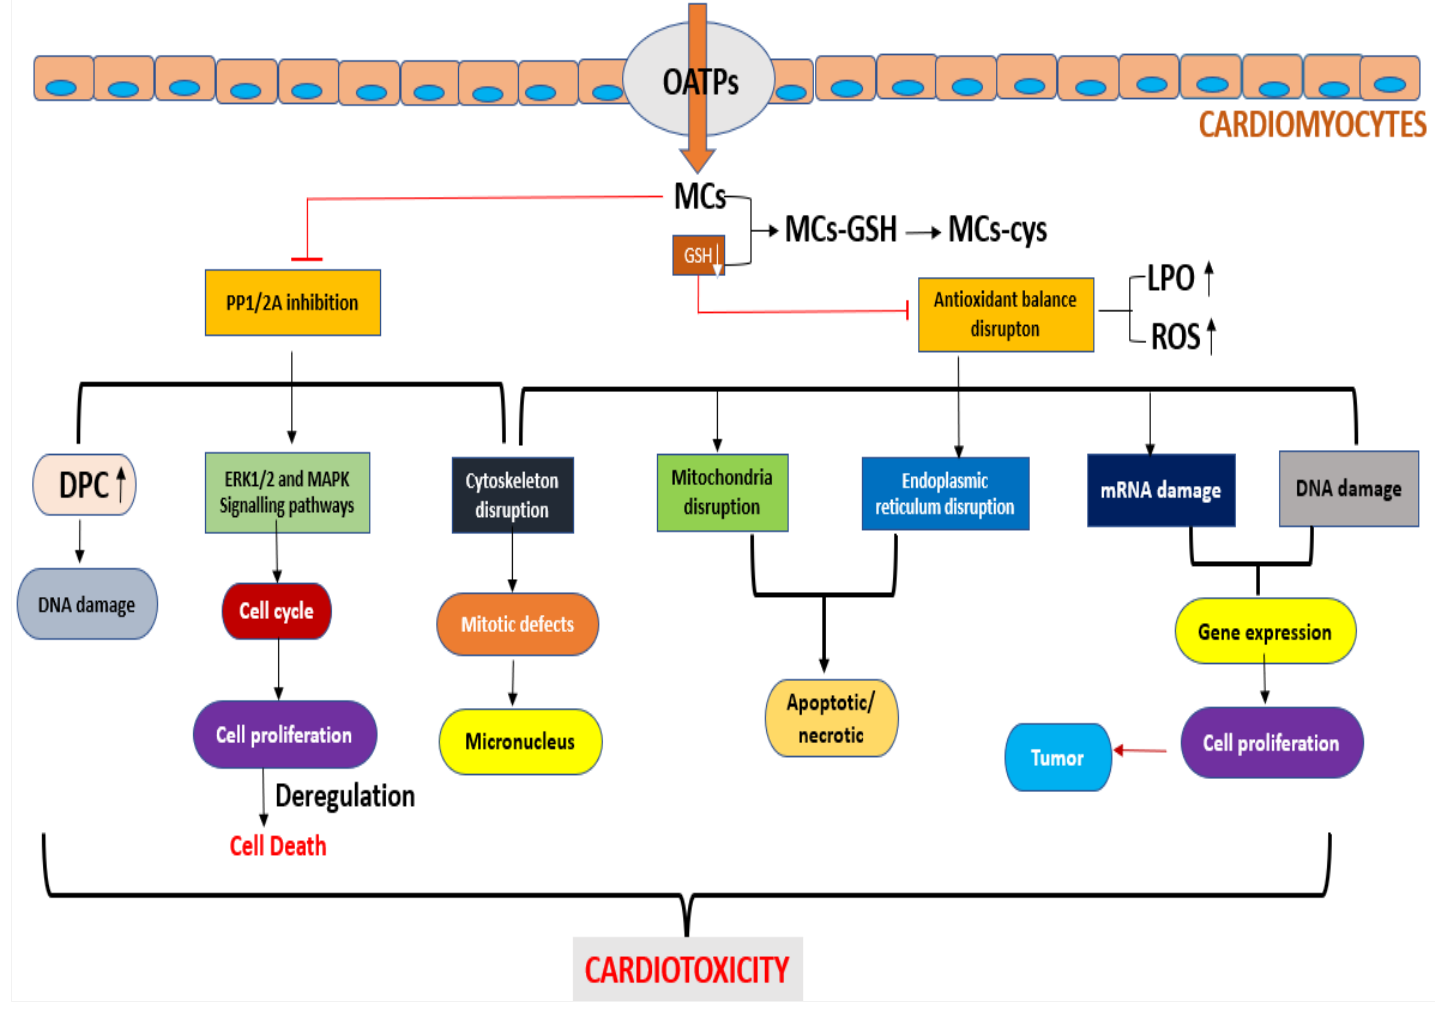
多项研究表明,MC可能导致线粒体氧化应力失衡,导致中微子渗入组织,增产增产,产生显著的氧化中间体,促进细胞老化并最终死亡. (57)在接触过程中,MC可以通过有机阴离子运输多肽(OATP)进入不同的细胞. (58)OATP基因家族几乎可以翻译到所有器官 (20)尽管某些OATP基因在特定组织中表达得更为频繁,甚至有选择性 (59) 心脏组织也不例外 (60). 心脏组织已被证明能表达几个OATP基因家族,包括OATP4A1,OATP2A1,OATP2B1和OATP3A1 (61)这表明,MC可以被送到心脏组织细胞并集中,可能对这些细胞构成威胁。 然而,MC到达心肌细胞的方法仍有待调查 (62)此外,MC在输血程度、OATP运输器类型及其表达水平之后进入细胞。 (63)。 。 。
网络最突出的特征是其对许多刺激的代谢灵活性,如成熟和饥饿的变化. 在长期病理情况下,心脏也能够重塑代谢途径,从而改变心肌内膜和收缩性能. (64). Glutathione(GSH)是一种内生解毒分子,在哺乳动物和水生物种的MC解毒中扮演重要角色. 在前一次调查中发现,GSH预处理可减轻MC对小鼠的有害影响 (65, 66)在小鼠和大鼠的心脏中发现了MC-LR-Cys和微囊氨酸-glutathione聚合物(MC-LR-GSH) (67)。 。 。
在哺乳动物体内由母体-LR引起的心肌毒性
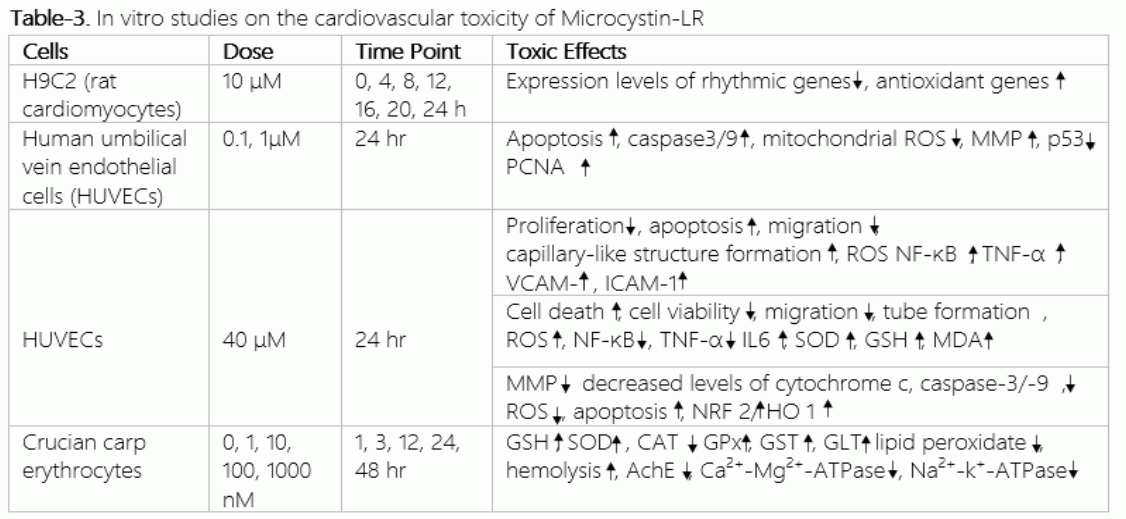
心血管系统是一个动脉和静脉的网络,心脏通过它泵血. 各种细胞类型构成心脏,其中心肌细胞和肌膜细胞是受MC-LR中毒影响的主要细胞和器官. 致癌性致癌-LR浓度高,导致肝细胞坏死、细胞骨骼改变和细胞死亡 (68)MC-LR在接触24小时后损害心脏细胞,进一步导致人类氧化性应激相关疾病 (69)人类可以通过各种方式接触氰诺毒素,但口服接触是最有害的,主要是饮用受感染的水或食用被污染的食物. (70)基因、环境的相互作用及其对心血管系统正常运行的影响被认为是造成心血管疾病的一个重要因素。 如表2和表3所示,许多研究表明,MCs可能在体内和体外损害心血管系统。 已经证明,急性接触致癌物质会干扰线粒体的细胞学和机能障碍。 MC在成人中可引起心肌萎缩和纤维化,在幼虫中可直接引起心脏畸形. MC可以影响心肌细胞的不同方面,包括其形状,细胞发育和optosis,cytoskeleton和节奏,超结构,氧化应激,膜潜力和线粒体呼吸链酶活性. (71)当MC在血液中行走并被送到心脏时,会引发心脏损伤.
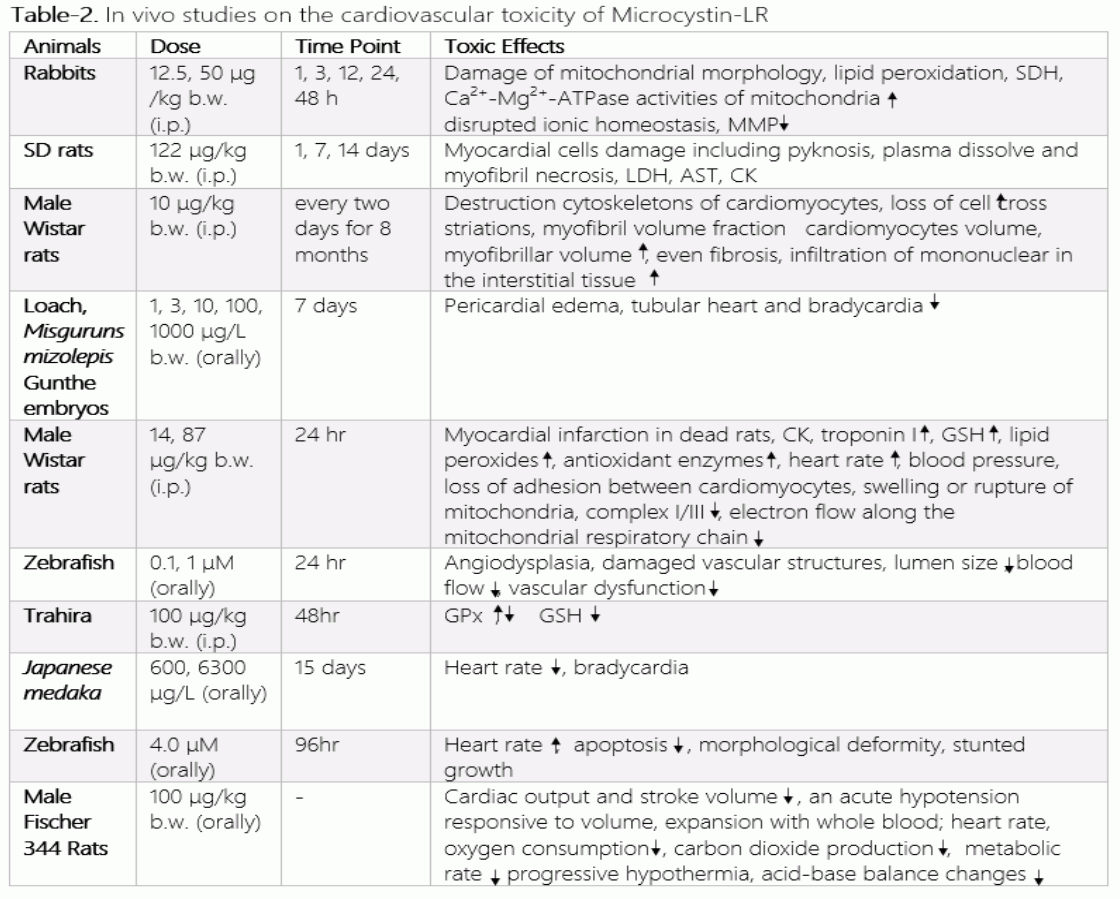
MC导致的病理生理改变包括中风体积和心脏输出下降,对整个血液体积扩张的低血压反应,血压和心率下降,氧气消耗减少,以及胰腺和肝脏血液储存的招募. (72)这可能导致各种疾病,包括心跳停止、低血压休克和低血压。 血管内皮细胞是血管动态平衡的关键调节器,因为它们能控制细胞分裂、血管再生、血管吞噬、炎症反应和血小板活性 (73)当产生大量的MC时,血液毛细血管中会产生大量的蛋白质,导致外围压力增大. 此外,还发现呼吸链酶I和III的复合体被抑制,表明线粒体电子运输链受阻. 注意到过氧化脂含量增加,心脏线粒体和苏奇酸脱氢酶活性发生形态变化。 线粒体电子运输链受到尼科蒂纳米德二核苷酸脱氢酶抑制作用的进一步影响。 此外,MC可能会改变线粒体中Ca2+-Mg2+-ATPase的功能,扰乱离子的顺位,并可能导致线粒体膜潜力(MMP)的丧失,最终成功提升心细胞的线粒体 (74)心肌毒性的两个影响是心能要求降低和线粒体异常。 据报告,在注入母体增生物的老鼠体内,心脏细胞中的Mitochondridrial功能障碍,接触母体增生物的斑马鱼幼虫的心率下降,与反应性氧物种的积累和心脏硬化有关。 (75, 76)。 。 。
MC-LR的潜在行动机制
OATP1B1、OATP1B2、OATP1B3和OATP1A2等有机阴离子运输器(OATP)尤其参与MC-LR吸收,它们在器官组织上表达的差异是导致整个体内摄入不平衡的原因。 根据以往的研究,通过使用基因组技术,抑制溶解性和高保存的蛋白质静脉/肾上腺磷酸酶是哺乳动物和鱼类体内毒素产生的致癌性毒性的细胞/分子加工作用模式。 (77). 蛋白质磷酸酶1(PP1)和2A(PP2A)主要受MC抑制,导致调控蛋白表达的动态平衡中断,刺激其下游蛋白,以及细胞骨骼重组. (78). MC的潜在作用机制是抑制蛋白质磷酸酯(PP),从而导致细胞蛋白的超磷化. 接触MC还会导致反应性氧物种(ROS)生产过多,导致氧化性损害. 越来越多的证据表明,Microcystins(MCs)具有遗传毒性,因为它们对DNA造成损害,这表明线粒体在导致细胞循环和线粒体硬化的吞噬中起着重要的调解者作用(图4)。 (79)在哺乳动物细胞中,PP调节基因表达,细胞信号传递,细胞生长和细胞分裂. (80). 根据研究,PP1和PP2A脱磷酸盐有多种靶蛋白质,包括Cav1.2和ATP敏感纳+/K+通道,以控制收缩性. (81)发现PP2B造成PP2A-A子单元或心肌扩张或高频的替换 (82)。 。 。
结论
人类健康风险与MC接触途径和剂量相关。 食用受污染食物和藻类膳食补充剂也是接触方式,还有身体接触、呼吸、栓塞和饮用水污染。 然而,人们强调,饮用水受污染和接触MC造成大部分接触。
微囊素通过抑制PP1、PP2A和氧化性应激,对肝脏和胃肠道、大脑、肾脏、心脏、呼吸和生殖系统等器官具有不利影响。 OATP通道将MC输送到细胞中,它们集中在主要靶器官和组织中. MC具有抑制PP1和PP2A活动的能力,这导致转录因子的脱磷,从而影响细胞斯基莱顿组织,基因表达,细胞死亡和CVD. 细胞存活力的丧失和吞噬症的增加,以及血液细胞和血管内皮细胞线粒体和ER的氧化应力和ROS水平的升高,也可能是MC暴露的原因. 除了对心血管系统有直接影响外,MC还可以通过损害肝脏,肾脏和胃肠系统间接导致CVD. 为了消除MC-LR的心肌毒性并缩小研究差距,需要一项标准化的动物模型战略来探索MC-LR的慢性和急性毒性影响,以提供令人信服的心肌毒性证据。 由于关于MC-LR的心肌毒性效应的信息不多,心肌并发症的作用仍然不清楚. 这意味着需要开展更多的研究,仅侧重于MC-LR的心肌毒性效应.
声明
- 作者贡献(CRediT)
- 所有作者对全部 14 项 CRediT 角色贡献均等(Conceptualization, Data curation, Formal analysis, Funding acquisition, Investigation, Methodology, Project administration, Resources, Software, Supervision, Validation, Visualization, Writing – original draft, Writing – review & editing)。
- 资助
-
This work was financially supported by a project from DST- SERB CRG/2018/003780 sanctioned to RKK.
- 利益冲突
- The authors do not have any relevant conflicts of interest.
- 伦理批准
- Ethics committee approval was not required for this article, as it is based on previously published literature and does not involve human participants, patient data or animals.
- 数据可用性
- Data sharing is not applicable to this article as no new data were created or analysed in this study.
参考文献 (82)
82 条参考文献中有 75 条已链接 DOI。
- Paerl HW, Paul VJ. Climate change: links to global expansion of harmful cyanobacteria. Water Res. 2012;46(5):1349-1363 DOI Crossref PubMed Google Scholar
- Wang Q, Xie P, Chen J, Liang G. Distribution of microcystins in various organs (heart, liver, intestine, gonad, brain, kidney and lung) of Wistar rat via intravenous injection. Toxicon. 2008;52(6):721-727 DOI Crossref PubMed Google Scholar
- Florczyk M, Lakomiak A, Wozny M, Brzuzan P. Neurotoxicity of cyanobacterial toxins. Environ Biotechnol. 2014;10 DOI Crossref PubMed Google Scholar
- Puddick J, Prinsep MR, Wood SA, Kaufononga SA, Cary SC, Hamilton DP. High levels of structural diversity observed in microcystins from Microcystis CAWBG11 and characterization of six new microcystin congeners. Mar Drugs. 2014;12(11):5372- DOI Crossref PubMed Google Scholar
- Cao L, Massey IY, Feng H, Yang F. A review of cardiovascular toxicity of microcystins. Toxins. 2019;11(9):507 DOI Crossref PubMed Google Scholar
- Wei H, Yang F, Wang Y, Zhou Y, Yan Y, Liang G, Yin L, Pu Y. Electrospun polymer nanofibres as solid-phase extraction sorbents for extraction and quantification of microcystins. Environ Technol. 2015;36(21):2796-2802 DOI Crossref PubMed Google Scholar
- Miller TR, Xiong A, Deeds JR, Stutts WL, Samdal IA, Lovberg KE, Miles CO. Microcystin toxins at potentially hazardous levels in algal dietary supplements revealed by a combination of bioassay, Immunoassay and Mass Spectrometric Methods. J Agr Food Chem. 2020;68(30):8016-8025 DOI Crossref PubMed Google Scholar
- Zegura B. An overview of the mechanisms of microcystin-LR genotoxicity and potential carcinogenicity. Mini Rev Med Chem. 2016;16(13):1042-1062 DOI Crossref PubMed Google Scholar
- Tokodi N, Drobac D, Meriluoto J, Lujic J, Marinovic Z, Vazic T, Lazic G, Petrovic T. Cyanobacterial effects in Lake Ludos, Serbia-Is preservation of a degraded aquatic ecosystem justified? Sci Total Environ. 2018; 635: 1047-1062 DOI Crossref PubMed Google Scholar
- Merel S, Walker D, Chicana R, Snyder S, Baures E, Thomas O. State of knowledge and concerns on cyanobacterial blooms and cyanotoxins. Environ Int. 2013; 59: 303-327 DOI Crossref PubMed Google Scholar
- Melaram R. Microcystins and daily sunlight: Predictors of chronic liver disease and cirrhosis mortality. J Environ Sci. 2019;3(3):379-388 DOI Crossref PubMed Google Scholar
- Meneely JP, Elliott CT. Microcystins: measuring human exposure and the impact on human health. Biomarkers. 2013;18(8):639-649 DOI Crossref PubMed Google Scholar
- Welten RD, Meneely JP, Elliott CT. A comparative review of the effect of Microcystin-LR on the proteome. Expos Health. 2019; 12: 1-19 DOI Crossref PubMed Google Scholar
- Feurstein D, Stemmer K, Kleinteich J, Speicher T, Dietrich DR. Microcystin congener-and concentration-dependent induction of murine neuron apoptosis and neurite degeneration. Toxicol Sci. 2011;124(2):424-431 DOI Crossref PubMed Google Scholar
- Vesterkvist PS, Misiorek JO, Spoof LE, Toivola DM, Meriluoto JA. Comparative cellular toxicity of hydrophilic and hydrophobic microcystins on Caco-2 cells. Toxins. 2012;4(11):1008-1023 DOI Crossref PubMed Google Scholar
- Puerto M, Pichardo S, Jos A, Camean AM. Comparison of the toxicity induced by microcystin-RR and microcystin-YR in differentiated and undifferentiated Caco-2 cells. Toxicon. 2009;54(2):161-169 DOI Crossref PubMed Google Scholar
- Song W, Rein K, Cruz Ad1, O'Shea K. Ultrasonically-induced degradation of Microcystin LR and RR: Identification of by products and effect of environmental factors. Adv Exp Med Biol. 2008; 619: 305 PubMed Google Scholar
- Xu S, Yi X, Liu W, Zhang C, Massey IY, Yang F, Tian L. A review of nephrotoxicity of Microcystins. Toxins. 2020;12(11):693 103 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Yang F, Wen C, Zheng S, Yang S, Chen J, Feng X. Involvement of MAPK/ERK1/2 pathway in microcystin-induced microfilament reorganization in HL7702 hepatocytes. J Toxicol Env Heal A. 2018;81(21):1135-1141 DOI Crossref PubMed Google Scholar
- Cao L, Huang F, Massey IY, Wen C, Zheng S, Xu S, Yang F. Effects of microcystin-LR on the microstructure and inflammation-related factors of jejunum in mice. Toxins. 2019;11(9):482 DOI Crossref PubMed Google Scholar
- Li X, Xu L, Zhou W, Zhao Q, Wang Y. Chronic exposure to microcystin-LR affected mitochondrial DNA maintenance and caused pathological changes of lung tissue in mice. Environ Pollut. 2016; 210: 48-56 DOI Crossref PubMed Google Scholar
- Hinojosa M, Gutierrez-Praena D, Prieto A, et al. Neuro toxicity induced by microcystins and cylindrospermopsin: A review. Sci Total Environ. 2019;668:547-565 PubMed Google Scholar
- Liu Y, Yang M, Zheng L, Nguyen H, Ni L, Song S, Sui Y. Antioxidant responses of triangle sail mussel Hyriopsis cumingii exposed to toxic Microcystis aeruginosa and thermal stress. Sci Total Environ. 2020; 743: 140754 DOI Crossref PubMed Google Scholar
- Massey IY, Wu P, Wei J, Luo J, Ding P, Wei H, Yang F. A mini-review on detection methods of microcystins. Toxins. 2020;12(10):641 DOI Crossref PubMed Google Scholar
- Alexander W. Branko furst's radical alternative: Is the heart moved by the blood, rather than vice Versa? P & T. 2017; 42(1):33-39 PubMed Google Scholar
- Guo Y, Pu WT. Cardiomyocyte maturation: New phase in development. Circ Res. 2020;126(8):1086-1106 PubMed Google Scholar
- Squire J. The actin-myosin interaction in muscle: Background and overview. Int J Mol Sci. 2019; 20: 5715 PubMed Google Scholar
- Ishii S, Oyama K, Shintani SA, Kobirumaki-Shimozawa F, Ishiwata SI, Fukuda N. Thermal activation of thin filaments in striated muscle. Front Physiol. 2020; 11: 278 DOI Crossref PubMed Google Scholar
- Rios E. Calcium-induced release of calcium in muscle: 50 years of work and the emerging consensus. J Gen Physiol. 2018;150(4):521-537 DOI Crossref PubMed Google Scholar
- Van Meer BJ, Krotenberg A, Sala L, Davis RP, Eschenhagen T, Denning C, Tertoolen LG, Mummery CL. Simultaneous measurement of excitation -contraction coupling parameters identifies mechanisms underlying contractile responses of hiPSC-derived cardiomyocytes. Nat commun. 2019;10(1):1-9 DOI Crossref PubMed Google Scholar
- Baudino TA, Carver W, Giles W, Borg TK. Cardiac fibroblasts: friend or foe? Am J Physiol-Heart C. 2006;291(3):H1015-H1026 DOI Crossref PubMed Google Scholar
- Talman V, Kivela R. Cardiomyocyte-endothelial cell interactions in cardiac remodeling and regeneration. Front Cardiovasc Med. 2018; 5: 101 DOI Crossref PubMed Google Scholar
- Jourde-Chiche N, Fakhouri F, Dou L, Bellien J, Burtey S, Frimat M, Jarrot PA, Kaplanski G, Le Quintrec M, Pernin V. Endothelium structure and function in kidney health and disease. Nat Rev Nephrol. 2019;15(2):87-108 DOI Crossref PubMed Google Scholar
- Milutinovic A, Zorc Pleskovic R, Petrovic D, Zorc M, Suput D. Microcystin-LR induces alterations in heart muscle. Folia Biol. 2006; 52: 116-118 DOI Crossref PubMed Google Scholar
- Zhang H, Zhang J, Chen Y, Zhu Y, 2007. Influence of intracellular Ca2+, mitochondria membrane potential, reactive oxygen species, and intracellular ATP on the mechanism of microcystin‐LR induced apoptosis in Carassius auratus lymphocytes in vitro. Environ. Toxicol. 2007; 22: 559-564 DOI Crossref PubMed Google Scholar
- Chen QM, Tu VC, Purdom S, Wood J, Dilley T, 2001. Molecular mechanisms of cardiac hypertrophy induced by toxicants. Cardiovasc. Toxicol. 2001; 1: 267-283 DOI Crossref PubMed Google Scholar
- Goodenough DA, Paul DL. Gap junctions. Csh Perspect Biol. 2009;1(1): a002576 PubMed Google Scholar
- Wang Y, Wang C, Ma J. Role of cardiac endothelial cell-derived MicroRNAs in cardiac remodeling. Discov Med. 2019; 28(152): 95-105 PubMed Google Scholar
- Severs NJ, Bruce AF, Dupont E, Rothery S. Remodelling of gap junctions and connexin expression in diseased myocardium. Cardiovasc Res. 2008;80(1):9-19 DOI Crossref PubMed Google Scholar
- Bacova BS, Vinczenzova C, Zurmanova J, Kasparova D, Knezl V, Benova TE, Pavelka S, Soukup T, Tribulova N. Altered thyroid status affects myocardial expression of connexin -43 and susceptibility of rat heart to malignant arrhythmias that can be partially normalized by red palm oil intake. Histochem Cell Biol. 2017;147(1):63-73 DOI Crossref PubMed Google Scholar
- Delmar M, Makita N. Cardiac connexins, mutations and arrhythmias. Curr Opin Cardiol. 2012;27(3):236-241 DOI Crossref PubMed Google Scholar
- Van Norstrand DW, Asimaki A, Rubinos C, Dolmatova E, Srinivas M, Tester DJ, Saffitz JE, Duffy HS, Ackerman MJ. Connexin43 mutation causes heterogeneous gap junction loss and sudden infant death. Circulation. 2012;125(3):474-481 DOI Crossref PubMed Google Scholar
- Jeong MH, Kim HJ, Pyun JH, Choi KS, Lee DI, Solhjoo S, O'Rourke B, Tomaselli GF, Jeong DS, Cho H. Cdon deficiency causes cardiac remodeling through hyperactivation of WNT/β-catenin signaling. P Natl A Sci. 2017;114(8): E1345-E1354 DOI Crossref PubMed Google Scholar
- Kontaridis MI, Geladari EV, Geladari CV. Structural alterations in the hypertensive heart disease result in intercalated disc remodeling and arrhythmias. In: Hypertension and Cardiovascular Disease. Springer. 2016 DOI Crossref PubMed Google Scholar
- Zhou M, Tu WW, Xu J. Mechanisms of microcystin-LR-induced cytoskeletal disruption in animal cells. Toxicon. 2015; 101: 92-100 DOI Crossref PubMed Google Scholar
- Alosman M, Cao L, Massey IY, Yang F., 2021. The lethal effects and determinants of microcystin-LR on heart: A mini review. Toxin Rev. 2021; 40: 517-526 DOI Crossref PubMed Google Scholar
- Sztormowska-Achranowicz K, Jankowski Z, Kocic I. Protective effect of nicotinamide and L-arginine against monocrotaline-induced pulmonary hypertension in rats: gender dependence. Pharmacol Rep. 2020;72(5):1334-1346 DOI Crossref PubMed Google Scholar
- Ziolo MT, Kohr MJ, Wang H. Nitric oxide signalling and the regulation of myocardial function. J Mol Cell Cardiol. 2008;45(5):625-632 DOI Crossref PubMed Google Scholar
- Lone Y, Bhide M, Koiri RK. Amelioratory effect of coenzyme Q10 on potential human carcinogen Microcystin-LR induced toxicity in mice. Food Chem. Toxicol. 2017; 176-185 DOI Crossref PubMed Google Scholar
- Bencivenga L, Liccardo D, Napolitano C, Visaggi L, Rengo G, Leosco D. β-adrenergic receptor signaling and heart failure: From Bench to Bedside. Heart Fail Clin. 2019;15(3):409-419 104 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Bononi A, Agnoletto C, De Marchi E, Marchi S, Patergnani S, Bonora M, Giorgi C, Missiroli S, Poletti F, Rimessi A, Pinton P. Protein kinases and phosphatases in the control of cell fate. Enzyme Res. 2011;329098 DOI Crossref PubMed Google Scholar
- Chasseigneaux S, Moraca Y, Cochois-Guegan V, Boulay AC, Gilbert A, Le Crom S, Blugeon C, Firmo C, Cisternino S, Laplanche JL. Isolation and differential transcriptome of vascular smooth muscle cells and mid-capillary pericytes from the rat brain. Sci Rep. 2018;8(1):1-12 DOI Crossref PubMed Google Scholar
- Wheeler-Jones CP. Cell signalling in the cardiovascular system: an overview. Heart. 2005;91(10):1366-1374 DOI Crossref PubMed Google Scholar
- Mehta PK, Griendling KK. Angiotensin II cell signaling: physiological and pathological effects in the cardiovascular system. Am J Physiol Cell Physiol. 2007;292(1):C82-C97 DOI Crossref PubMed Google Scholar
- Barreras A, Gurk-Turner C. Angiotensin II receptor blockers. Proceedings (Baylor University Medical Cn). 2003;16(1):123-126 DOI Crossref PubMed Google Scholar
- Varga I, Kyselovic J, Galfiova P, Danisovic L. The non-cardiomyocyte cells of the heart. Their possible roles in exercise- induced cardiac regeneration and remodeling. In: Exercise for Cardiovascular Disease Prevention and Treatment. Springer. 2017 DOI Crossref PubMed Google Scholar
- Zhang J, Xie Y, Fan Q, Wang C. Effects of karanjin on dimethylhydrazine induced colon carcinoma and aberrant crypt foci are facilitated by alteration of the p53/Bcl2/BAX pathway for apoptosis. Biotech Histochem. 2020:1-11 DOI Crossref PubMed Google Scholar
- Steiner K, Zimmermann L, Hagenbuch B, Dietrich D. Zebrafish Oatp- mediated transport of microcystin congeners. Arch Toxicol. 2016;90(5):1129-1139 DOI Crossref PubMed Google Scholar
- Li TT, An JX, Xu JY, Tuo BG. Overview of organic anion transporters and organic anion transporter polypeptides and their roles in the liver. World J Clin Cases. 2019;7(23):3915 DOI Crossref PubMed Google Scholar
- Moraes JG, Behura SK, Geary TW, Spencer TE. Analysis of the uterine lumen in fertility-classified heifers: I. Glucose, prostaglandins, and lipids. Biol Reprod. 2020;102(2):456-474 DOI Crossref PubMed Google Scholar
- Bakos E, Tusnady GE, Nemet O, Patik I, Magyar C, Nemeth K, Kele P, Ozvegy-Laczka C. Synergistic transport of a fluorescent coumarin probe marks coumarins as pharmacological modulators of Organic anion-transporting polypeptide, OATP3A1. Biochem Pharmacol. 2020; 182: 114250. DOI Crossref PubMed Google Scholar
- Foss AJ, Aubel MT, Gallagher B, Mettee N, Miller A, Fogelson SB. Diagnosing microcystin intoxication of canines: Clinicopathological indications, pathological characteristics, and analytical detection in postmortem and antemortem samples. Toxins. 2019;11(8):456 DOI Crossref PubMed Google Scholar
- Valerio E, Barreiros S, Rodrigues S, Turkina MV, Vasconcelos VM, Campos A: New insights in Saccharomyces cerevisiae response to the cyanotoxin Microcystin-LR, revealed by proteomics and gene expression. Toxins. 2020;12(10):667 DOI Crossref PubMed Google Scholar
- Kolwicz Jr SC, Purohit S, Tian R. Cardiac metabolism and its interactions with contraction, growth, and survival of cardiomyocytes. Circ. Res. 2013; 113: 603-616 DOI Crossref PubMed Google Scholar
- Guzman- Guillen R, Puerto M, Gutierrez-Praena D, Prieto AI, Pichardo S, Jos A, Campos A, Vasconcelos V, Camean AM. Potential use of chemoprotectants against the toxic effects of cyanotoxins: A review. Toxins. 2017;9(6):17 DOI Crossref PubMed Google Scholar
- Hermansky S, Stohs S, Eldeen Z, Roche VF, Mereish K. Evaluation of potential chemoprotectants against microcystin‐ LR hepatotoxicity in mice. J Appl Toxicol. 1991;11(1):65-73 DOI Crossref PubMed Google Scholar
- Buckingham M, Meilhac S, Zaffran S. Building the mammalian heart from two sources of myocardial cells. Nat Rev Genet. 2005;6(11):826-835 DOI Crossref PubMed Google Scholar
- McLellan NL, Manderville RA: Toxic mechanisms of microcystins in mammals. Toxicol Res. 2017;6(4):391-405 DOI Crossref PubMed Google Scholar
- Martins ND, Colvara WA, et al. Microcystin-LR: how it affects the cardio-respiratory responses to hypoxia in Nile tilapia, Oreochromis niloticus. Chemosphere. 2011;84(1): 154-159 DOI Crossref PubMed Google Scholar
- Funari E, Testai E. Human health risk assessment related to cyanotoxins exposure. Crit Rev Toxicol. 2008; 38: 97-125 DOI Crossref PubMed Google Scholar
- Vecoli C, Pulignani S, Foffa I, Grazia Andreassi M. Congenital heart disease: the crossroads of genetics, epigenetics and environment. Curr genomics. 2014; 15: 390-399 DOI Crossref PubMed Google Scholar
- Lone Y, Bhide M, Koiri RK. Amelioratory effect of coenzyme Q10 on potential human carcinogen microcystin-LR induced toxicity in mice. Food Chem Toxicol. 2017; 102: 176-185 DOI Crossref PubMed Google Scholar
- Curry FRE, Adamson RH. Vascular permeability modulation at the cell, microvessel, or whole organ level: towards closing gaps in our knowledge. Cardiovasc Res. 2010;87(2):218-229 DOI Crossref PubMed Google Scholar
- Liu Y, Song L, Li X, Liu T. The toxic effects of microcystin-LR on embryo-larval and juvenile development of loach, Misguruns mizolepis Gunthe. Toxicon. 2002;40(4):395-399 DOI Crossref PubMed Google Scholar
- Diez-Quijada Jimenez L, Medrano Padial C, Llana Ruiz-Cabello M, Catunescu GM, Moyano Salvago R, Risalde Md1A, Camean Fernandez AM, Jos Gallego AM. Cylindrospermopsin - microcystin-LR combinations may induce genotoxic and histopathological damage in rats. Toxins. 2020; 12: 348 DOI Crossref PubMed Google Scholar
- Zeng C, Sun H, Xie P, Wang J, Zhang G, Chen N, Yan W, Li G. The role of apoptosis in MCLR-induced developmental toxicity in zebrafish embryos. Aquat Toxicol. 2014;149:25-32 DOI Crossref PubMed Google Scholar
- Buratti FM, Manganelli M, Vichi S, Stefanelli M, Scardala S, et al. Cyanotoxins: producing organisms, occurrence, toxicity, mechanism of action and human health toxicological risk evaluation. Arch Toxicol. 2017;91(3):1049-1130 DOI Crossref PubMed Google Scholar
- Massey IY, Yang F, Ding Z, Yang S, Guo J, l-Osman M, Kamegni RB, Zeng W. Exposure routes and health effects of microcystins on animals and humans: A mini-review. Toxicon. 2018; 151: 156-162 DOI Crossref PubMed Google Scholar
- Chen L, Xie P. Mechanisms of microcystin -induced cytotoxicity and apoptosis. Mini Rev Med Chem. 2016;16(13): 1018-1031 DOI Crossref PubMed Google Scholar
- Samarasimhareddy M, Mayer D, Metanis N, Veprintsev D, Hurevich M, Friedler A. A targeted approach for the synthesis of multi- phosphorylated peptides: a tool for studying the role of phosphorylation patterns in proteins. Org Biomol Chem. 2019;17(42):9284-9290 DOI Crossref PubMed Google Scholar
- Heijman J, Ghezelbash S, Wehrens XH, Dobrev D. Serine/threonine phosphatases in atrial fibrillation. J Mol Cell Cardiol. 2017; 103:110-120 105 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Gergs U, Kirchhefer U, Bergmann F, Kunstler B, Miblinger N, Au B, Mahnkopf M, Wache H, Neumann J. Characterization of stressed transgenic mice overexpressing H2-histamine receptors in the heart. J Pharmacol Exp Ther. 2020;374(3):479- DOI Crossref PubMed Google Scholar
阅读全文
在此打开 PDF
正在加载 PDF…
若 PDF 未在此显示,请使用上方的下载按钮。
如何引用本文
Rajpoot R, Koiri RK. Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals. Ulutas Med J. 2023;9(2):92-105. doi:10.5455/umj.20221222071638
Rajpoot, R., & Koiri, R. K. (2023). Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals. The Ulutas Medical Journal, 9(2), 92–105. https://doi.org/10.5455/umj.20221222071638
Rajpoot, R. and Koiri, R.K. (2023) 'Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals', The Ulutas Medical Journal, 9(2), pp. 92–105. doi: 10.5455/umj.20221222071638.