The Ulutas Medical Journal · ISSN 2149-0430 (basılı), 2149-388X (çevrimiçi) · https://www.ulutasmedicaljournal.com/?mno=133517
Derleme · Açık erişim
Mikrocystin-LR Indük Cardiotoxicity in Mammals
Başlık, özet ve tam metin makine çevirisidir. İngilizce aslı
- Biochemistry Laboratory, Department of Zoology, Dr. Harisingh Gour Vishwavidyalaya, Sagar, Madhya Pradesh, India-470003 ROR
Özet
Eutrophication ve iklim değişikliği, küresel bir halk sağlığı sorunu haline gelen iğrenç cyanobacterial çiçek yetiştirdi. Su vücutlarında bulunan en tehlikeli cyanotino mikrocystin (MC), cyanobacterial metabolizmanın bir ürünü. Birkaç çalışma, karaciğere ek olarak, kalbin MCs zehirlenmesi için başka bir hedef organı olabileceğini önermektedir. Son araştırmalar, MC maruziyeti ve kardiyotoksisite arasında net bir bağlantı gösterir, insan kardiyovasküler sağlığı için bir risk ortaya çıkarır. Tüm dokular, hücreler, kan ve kalp damar dokularını içeren kardiyovasküler sistem, MC'lerden etkilenmeyen, anormal kardiyovasküler sistem yapısı ve/veya işlevi ile sonuçlanabilir. Bu inceleme, MC kardiyonoksisitenin protein phosphatase baskı ile bağlantılı olabileceği ve sözleşmesel ünite, sözleşmeli güç üretimi, intercellular eklem proteinlerinin rolü ve anjisin sinyalizasyon yolu rolü kardiyomisitlerde ilişkilendirilebilir.
Anahtar kelimeler
Tam metin
Tam metnin makine çevirisidir; geçerli sürüm İngilizce asıldır. İngilizce aslı
Giriş Giriş
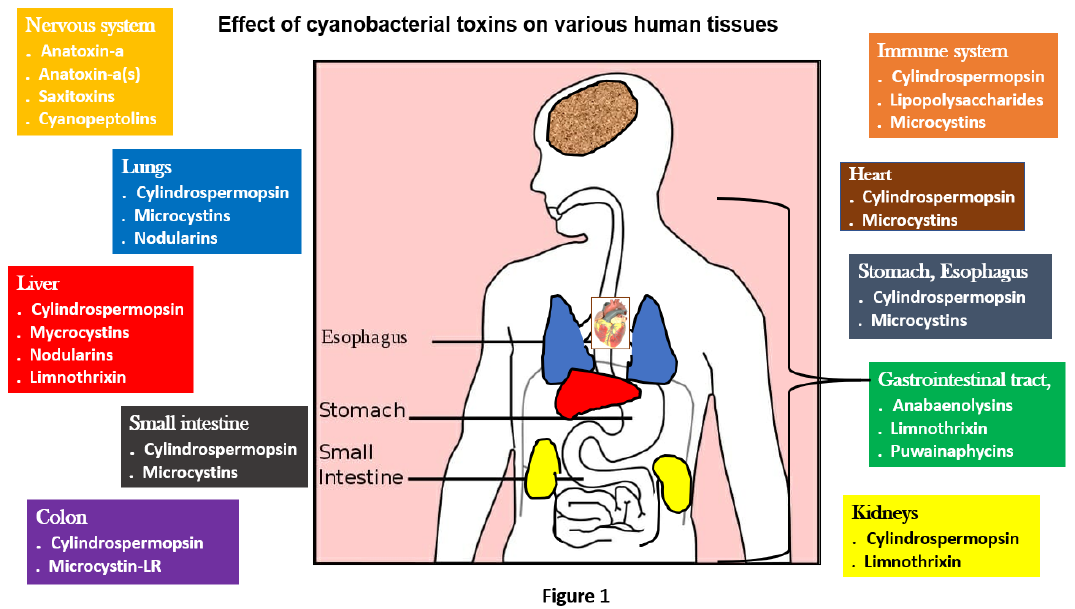
Cyanobacteria, dünya çapında birçok ekosistemde başarılı hale getiren çeşitli adaptasyon ve stratejilerin geliştirilmesine izin veren uzun bir evrimsel tarihe sahiptir. (1)Bu adaptasyonlar, cyanobacterial türlerin diğer algal türlerini beceriksiz hale getirmelerine ve belirli koşullar altında toplanmalara izin verir (CyanoHABs). Cyanobacteria, dünya çapında taze, brackish ve deniz su vücutlarında bulunur. Toxins (cyanotinos) bazı cyanobacteria türleri tarafından üretilir ve kalp (Figure 1) dahil olmak üzere birçok dokuya zararlıdır. Mikrocystins (MC) bu cyanotinosların en sık ve zararlı olduğu düşünülmektedir. (2)Cyanotinos su organizmalarına yoğunlaşıyor ve çeşitli trophic düzeyleri aracılığıyla gıda zincirini geçti, bu da insanlara ve hayvanlara sağlık sorunlarına neden oluyor. (3)Mono Çevrimsel peptid mikrocystins (MC) en yaygın, yaygın olarak dağınık, krianobacterial çiçekçileri ortadan kaldırmak için aşırı derecede zehirli ve zor. Mikrocystis, Anabaena, Anabaenopsis, Oscillatoria ve Nostoc MCs üretiyor, bir aile döngüsü heptapeptid cyanotinos (4). amino asitlerdeki değişiklikler, peptid serisi, hidroxylation, epimerizasyon ve toksisite 100 MC'den fazla izoforms tespitine neden oldu. (5)Mikrocystin-leucine arginine (MC-LR), MC ailesinin en bol ve zehirli üyesidir, doğal sularda toplam mikrocystin% 46 ile 99,8 arasında bu mikrocystin formlarında bulunur. Su çözünmüş, sabitlenmiş veya filtrelenmiş su ve 300 °C'ye kadar sıcaklıklarda bile tüm MC-LR özellikleridir. Dünya Sağlık Örgütü (WHO), içme ve içme suyu için 1 μg/L MC'lerin geçici bir sınırı kurdu. (6) Protein phosphatase 1 ve 2A'yı engelleyerek, MCs heratotoksis ve tümör teşvik ediciler olarak hareket eder (2)Protein phosphatase engeli, MC cytotoxicity ve tümör-promoting action ile bağlantılıydı, bu da gastrit inflamasyonu, heratocellular karsinoma, akciğer kanseri, böbrek yetmezliği, kardiyovasküler hastalık ve splenic hastalık ile ilişkilendirildi. (7–9)Eutrophication-indüklenen cyanobacterial çiçek ve cyanotoksi kirliliği dünya çapında su habitatlarında daha yaygın hale geliyor (10). İnsanlar çeşitli şekillerde MCs ile temasa geçebilirler. Bunlar, kirletici suyu tüketerek, temasa geçmek, nefes almak, beslenme takviyeleri almak ve hemodiiyaliz almak için. (11).
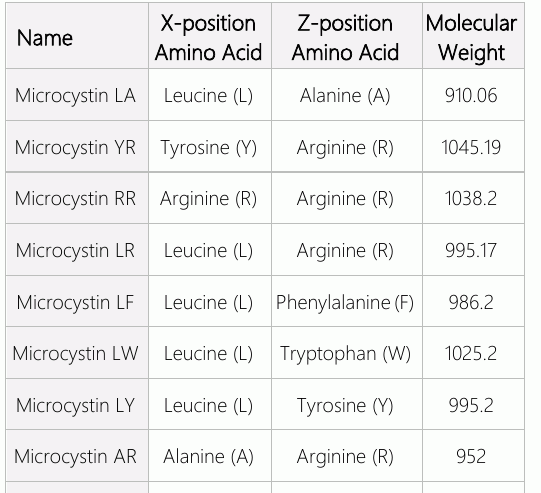
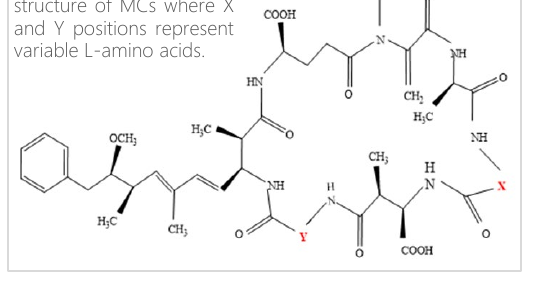
Mikrocystins en yoğun olarak incelenen cyanotinolardan biridir. Mikrocystin yedi peptid-linked amino asitle, terminal amino asitleri ile konulmuş bir döngü moleküldür. (12)En riskli mikrocystin varyantlarından biri muhtemelen mikrocystin-LR (MC-LR). Protein phosphatas 1 ve 2A (PP1 ve PP2A) serine/teonine protein phosphatasfatas (13). MCs, 100 farklı form ile mono Çevrimsel peptid zehirleridir (14)Yedi amino asit, her biri ayrı bir taraf zinciri (ADDA grubu) olan 1000 Da yapısında bir ringde düzenlenir. Her çeşitliliğin adı, L-amino asitleri (e.g. L-leucine and L-arginine in MC-LR) tarafından değiştirilebilir iki pozisyondan elde edilir. Değişikliklerin kutuplaşması değişir; MC-LF (Finanlanine ile) ve MC- LW (Deptophan ile), Hidrofobik amino asit kalıntıları içerirken, MC-LR daha hidrophilic (15)Pek çok MC türü, X ve Y pozisyonlarındaki amino asit değişiklikleri nedeniyle, 2. MC çeşitleri en yaygın olanıdır, her biri leucine (L), arginine (R) ve tyrosine (Y) (Table 1) (16)Adda moiety MC aktivitesi için önemlidir ve tüm varyantlarda bulunur. (17). MCs, protein fosforlarının (PP1) ve protein fosforlarının (PP2A) engellenmesi nedeniyle toksisiteye neden olur. (18)Hayvanlar ve insanlarda, MCs her zaman toksikiteye neden olduğu bulunmuştur. (19)Ancak, MC'lerin koloniyi, akciğeri, kalbi, beyni, testileri ve böbrek böbreklerini etkilediğine dair kanıtlar var. (20–24).
Cardiomyosits: Kalp sözleşme ünitesi
Kalp kapasitesi sürekli olarak kesinti olmadan pompalanır, rahatlatıcı (diastole) ve sözleşmelendirme (systole), kanın damar sistemi (systole) aracılığıyla sabit bir dolaşım sürdürme işini gerçekleştirmesine izin verir (systole) (25)Kartiomyosits, bu ritmin% 30'unu oluşturan kardiyak fibroblasts ile birlikte, endotel hücreleri ve pericytes ile birlikte, bu ritimde sözleşme yapabilmelerini sağlıyor. Büyük boyutlarından dolayı, kardiyomiositler, myocardium hacminin yaklaşık% 85'ini oluşturmaya inanılıyorken, hücre tiplerinin sadece% 30'unu oluşturan hücre tiplerine inanıyorlar. (26)Karmisitler olarak bilinen özel kas hücreleri, sarkomerler olarak bilinen myofilamentlerin tekrarlanan desenlerini içeren myofibrillerden yapılmıştır. Sarcomeres birincil seçmenler güçlü Myosin filamentler ve ince fiilin filamentleri, bu da sarkomere uzunluğu bir diğerini sallayarak. Bu, kardiyomiyositin sözleşmeye neden olduğunu koordine eden çoksarkomere'nin temelidir, bu da kas filament hipotezinin bir parçasıdır. (27).
Anlaşmazlık gücünün nesli: excitation- kontration coupling
Cardiomyosits, işlem potansiyelinin hücre içinde geçmesine izin veren yüksek uzman bir T-tubular ağına sahiptir ve Cade'de yardımcı olur.2+ L-type Ca2+ Kanallar (LTCC) bu, membran deposuna açık. Sarcomixic reticulum açılış sonuçları Cacomixic reticulum open results in a highly release of Ca2+ RyRs (ryanodine reseptörleri) dış CaRs tarafından aktive edildiğinde hücreye dönüştürülür.2+ bağlayıcı bağlayıcı bağlayıcı (28). kalsiyum kaynaklı kalsiyum salıverme (CICR) olarak bilinen prosedür, ücretsiz cytosolic Ca2+, myofilamentleri aktive etmek ve kalbin sözleşmeye neden olur (29). Başlangıçta Caponin'in inhibitörü Caponin tarafından serbest bırakıldım2+ Troponin C'ye bağlı olarak, bir allosteric geçişine neden olan, davranışın filamentlerini ve myosin bağlayıcı sitelerini açığa çıkarır. ATP hidrolysis sonra kalın filament myosin kafaları ince filamentlerin bağlayıcı bölgelerine bir köprü oluşturabilir ve sarkomere ile güçlü sözleşmeleri yürütür. Kalp, myocardium diastole fazı sırasında rahatlatdığında kanla yeniden yüklenebilir. (28). Ca2+ Troponin C'den detaches ve ya da hücreden sodyum-kalcium değişimleyicileri (NCX) tarafından ortadan kaldırıldı.2+ Üç sodyum iyonları (Na+) veya reabsorbed into sarkozmik reticülum via sarkozmik reticulum Ca2+ATPase (SERCA) Myocardial rahatlama ve çapraz-bridge oluşumu, ücretsiz Cakarna'da düşüşle engelleniyor2+ (30) Kardiyasit kontrasepsiyon ve kardiyak ritmini içeren sıkı bir şekilde düzenlenmiş olan kardiyak eksorasyon sürecine herhangi bir kesintiler karşı çıkabilir. Çoğu myocardial ECM proteinleri, kalbi yeniden modellemek ve ekstra hücreli matrix (ECM) korumak için de gerekli olan kalp fibroblast hücreleri tarafından üretilmektedir. Fibroblastlar, kardiyomisitlere yakın olduklarından ve ECM'nin kompozisyonunu değiştirme gücüne sahip olabilirler. (31).
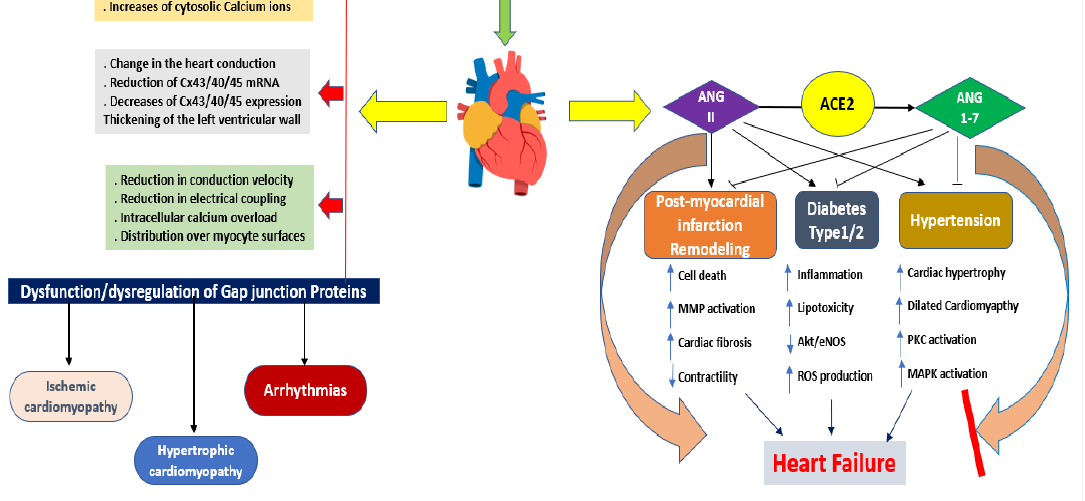
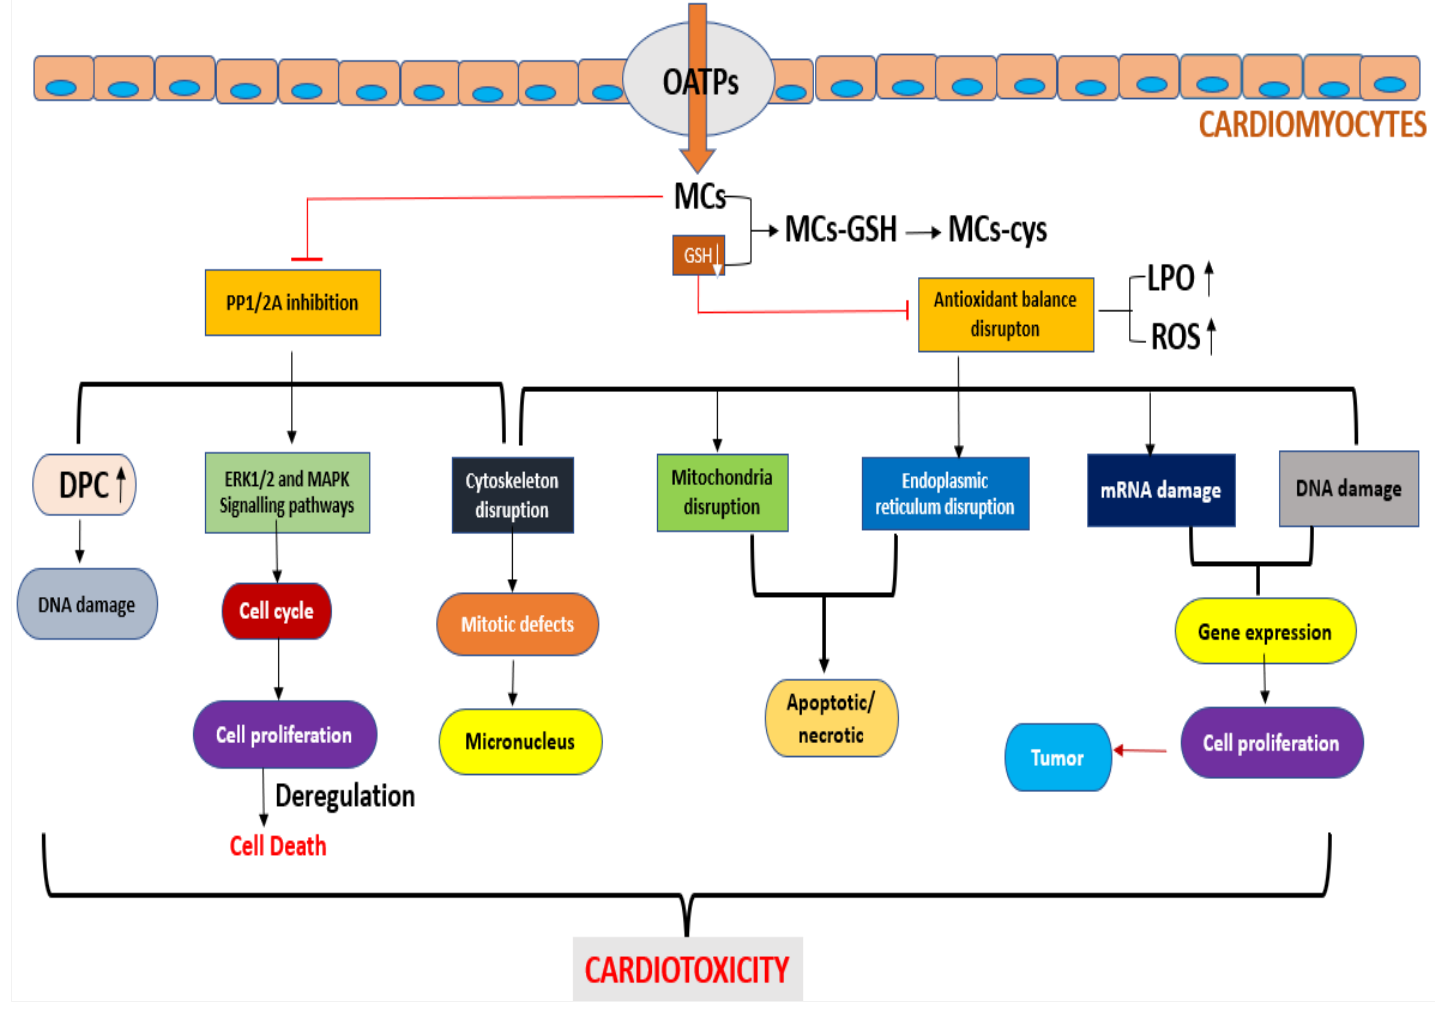
Doku hasarının ardından, kardiyak fibroblastlar da yakındaki kardiyomiyositlerden kaynaklanan sıkıntı sinyalleri almaya ve tepki vermeye dahil edilebilir. Kardiyositlerin yüksek metabolik talepleri çoğunlukla kalp mikrovasküler endotel hücreleri tarafından besin ve oksijen ile tedarik ederek memnundur. (32)Kalp endotel hücrelerinin diğer işlevleri, hücreli bağlantıları teşvik etmek ve trombus gelişimlerini önlemek ve trombus gelişimlerini önlemek içerir. (33). Herhangi bir yaralanma, kardiyak mikrovasküler endotelyal hücrelerin kritik fonksiyonu nedeniyle kardiyasitlerin oksijen, besin ve biyolojik sinyalleştirici bileşenleri tedariki olarak kardiyasitleri olumsuz etkileyecektir. Araştırmacılar, MC-LR'ye sürekli maruz kalmanın etkilerini, MC- LR'ye kronik maruz kalmanın kalp kaslarına risk teşkil etmesi muhtemel. Histopathological deneyler, kardiyomisitlerin genişlemesi, hücre haçlarının kaybı, fibroz ve atipik nükleksiyonlar ve atipik nükleksiyonlar, fibrozlerin kaybı ve atipik nükleksiyonlar, fibrozler ve atipik çekirdekler (34)Ek olarak, MC-LR yönetimi enlarged kardiyomiositler, dejeneratif kas lifleri, myocytol ve sıçanların kalbindeki aberrant çekirdekleri (35)Bu bulgular insan kardiyo-myopatik kalp dokusunda doğrulandı, sözleşmeli başarısızlık ve sin iskeletsel anomalilerin ilgili olduğu yerlerde (36). Kalp ve intercellular kavim proteinlerinin rolü hem homotypic (aynı hücre tipi arasındaki bağlantılar) hem de heteroseksüel bağlantıları boşluk kavşaklarında gerçekleşir, hem kardiyomisitlerde hem de destek hücrelerde bulunan önemli bir tür intercellular bağlantısı. Gap kavimleri, birbiriyle temasa geçen tüm insan hücrelerindeki kanallar olarak hareket eder, iyonlar ve küçük molekülleri doğrudan hücreler arasında transfer edilmelidir. (37). 1 kDa'dan daha az moleküler ağırlık, boşluk kesişim kanallarında bileşik yapar. The connexin type and sorumlu of the pore-form molekülü malzemenin ne kadar dayanılmaz olduğunu belirler. Gap kavimleri kalpte önemli bir rol oynar çünkü organ, mikrovaskülerden kardiyomiyositlere hızlı bir oksijen ve besin transferi gerektirir. (38)Kalpteki boşluklar, mevcut akış için kanalları yaratır, bu da koordineli eylem potansiyel yayılımına izin verir. Konnexin'in (Cx) proteinleri, elektrik dürtülerinin hızlı iletimi için gereklidir. Cx43, Cx40 ve Cx45, kalp myositlerde ifade edilen ana konnexins, Cx43 ile en yaygın olarak en yaygın olan Cx43. (39)Cx43'ün kalpteki yüksek ciro oranı nedeniyle, Cx43 bozulmasını izlemek hem sağlıklı hem de patolojik ülkelerde organdaki boşluk kesişimini kontrol etmek için bir strateji olabilir. (40).En yaygın boşluk konnexin-43 (Cx43) ve normal eylem potansiyellerinin yayılımı onun varlığına bağlıdır (41). Birkaç kardiyak bozuklukta, boşluk kavşak kanallarını oluşturan konneküler moleküller, daha sonra hücre sınırlarına iç içe dönük disklerden ya da taşındı. Eylem potansiyel yayılımı rahatsız olabilir ve arrhythmias yakın kardiyomiositler arasındaki boşluk kesişiminde kusura maruz kalabilir çünkü koordineli elektrik aktivitesi kalbin senkronizasyonu için gereklidir. Atrial fibrillation ve yeni doğan bir ölüm Cx43 mutasyonu ile bağlantılıydı (42). Gap remodeling, hastalıklı myocardium (Figure 3) değişen dizi ve boşluk eklemleri nedeniyle mikrocystin tarafından kaynaklanmaktadır. (43) Cx43 ile sınırlı noktalar daha sonra hücre sınırlarına taşındı, son uç-to-end intercalated disks (IDs). Normal, ischemic ve hipertrophied sol ventrikles eşit büyüklükte plaklar vardı, patolojik kalpler% 40 daha az miktarda Cx43 sergiledi. (44). Boşluk kaviminin daha sonraki dönüşümü, yarı zamanlı olarak% 30 ila% 40 oranındaki boşluk boşluğunun önemli bir özelliği gibi görünüyor. MC-LR etkisi, mikrotubulları, mikrofilamentleri ve cytokeratin orta filamentleri bozan iç boşlukların genişlemesinden sorumlu olduğu düşünülmektedir. (45). MC'nin protein phosphatas ile etkileşimi, kardiyak kasların tespitine olanak sağlar. MC enjeksiyonları temel süreçlerdir ve görüntülenen kardiyotoksisite seviyelerinin yanı sıra, bir problemin karıştığı hakkında bilgi sağlayabilirler. (46).
Figu
Nitrik oksit (NO) kalbin fizyolojisinde önemli bir rol oynar ve bu da enzim nitrik oksit sinthase (NOS). Cardiyak nitrik oksit,otropy'de olumlu başlangıç yaparak vasküler ve kardiyak işlevleri düzenler (örneğin myocardal sözleşmeksiyonu)2+ Hareketler, vazodilasyon, hız ventriküler rahatlama ve kardiyak metabolizmayı kontrol edin (47)Bu NO sinthas, seviyelerini arttırmak için gerekli olan etkiyi ayarlamak için birlikte çalışır. Kalp başarısızlığı bu dengeyi aşırı NO üreterek hücresel kesintilerden geliyor (48)dokularda yüksek NO membran lipid peroxidasyon ile ilişkilendirilmiştir. MC-LR-treatedanimal'teki yüksek LDH, elektron taşıma zincirinde enerji blokajına atfedilebilir, çünkü hiçbir zaman kompleksleri I-III ve mito-C-oxidase of the Concordl elektron taşımacılık zinciri, hücresel respirasyon ve ATP sentezini azaltın. (49).
Birgiotensin sinyalizasyon yolu kardiyomisitlerde
Kardiyak sinyalizasyonda önemli bir rol oynayan hücre yüzey reseptörlerinin birincil seti G-protein çift reseptörleri (GPCR). GPCRs, angiotensin reseptör, α- ve LR- adrenergic reseptörler ve ET1B reseptörleri içerir. Bu reseptörler tarafından kullanılan sinyalleme, vasküler ton, sözleşmesel güç ve kalp oranı değiştirebilir (50). Serine/threonine kinas, fosfat gruplarının serine veya threonine amino asit kalıntılarına ekleyen önemli protein kinaslar, eukaryotic hücrelerdeki çoğu sinyal transdüksiyonundan sorumludur ve proteinde uygunluk değişikliğine neden olur (51)Fosforylated olan gerilim bağımlı kalsiyum kanalları daha düşük intracellular Ca2+ seviyeleri vardır, bu da gemi duvarları için sözleşme yapmak için daha zor hale getirir. (52)Protein fosfatları hedef proteinlerinden fosfat grupları kaldırır, sinyal transdüksiyonunu modülasyon yoluyla azaltır (53)Angiotensin II, kardiyovasküler hücrelerde ATR1'e bağlayıcı olarak fosfor C (PLC) aktivitesini teşvik eder. Bu enzymatik aktivite, inositol üretmek için bir membran phospholipidi katılıyor (1, 4, 5)- tris fosfat (IP3) ve diacylglycerol (DAG). Hem intracellular Ca2+ Seviyeler ve protein kinase C, bu ikinci elçiler (PKC) tarafından yükseltilir ve intracellular proteinleri phosforylateddir ve böylece stimuli'ye yanıt olarak biyolojik bir reaksiyona neden olur. ATR1 ve ATR2, angiotensin reseptörlerinin 2 alt tipidir (ATR), bu sinyal yolunda yer alan ve kardiyak hücrelerin yanıtını angiotensin II. Angiotensin-II, kardiyovasküler sistemde kritik bir role sahiptir, çünkü kan akışı ve damar tonudaki dakika varyasyonlarını düzenler, organların yeterli perfüzyonunu korur. Angiotensin II'nin olumsuz etkileri, hipertansiyon ve kalp hipertrophy gibi, uzun ATR1 aktivasyonundan ortaya çıkabilir. (54)Bu sinyallemenin kesintisi, angiotensin II'nin kalp ve vasküler sisteminde (Figure 3) tutarlı bir farmakolojik hedeftir. Angiotensin reseptör blokerler (ARB) kongestive kalp yetmezliğinin tedavisinde faydalıdır (CHF) çünkü kalbin yeniden yapılandırılmasını ve agiotensin II'nin adsorpsiyonunu önlemeyi engelleyebilirler. (55). Kanıt, RTKs ve GPCR'lerin kardiyovasküler sistem hücrelerine "speak" veya intracellular sinyalini koordine etmek için birbiriyle ifade ettiğini destekler. Transactivation olarak bilinen eşsiz bir sinyal mekanizması sayesinde, GPCRs, işlevleri için büyüme faktörü reseptörlerinin sinyal transdüksiyon makinesini komutan olabilir. Angiotensin II, hiperaktif genlerin ifadesini kontrol eden belirli transdüksiyon yol yollarından ayrılan EGFR'yi aktive ederek kardiyomisitlerin genişlemesini doğrudan teşvik edebilir.
MC-LR'nin kalpteki dağılımı ve metabolizması raporlara göre, kalpli hücre hacminin yaklaşık% 40'ını oluşturan kardiyomisitler özellikle mikondriyatik hücre hacminin yüksek olduğu (56).
Numerous çalışmalar, MCs'in Concordl oxidative streste bir dengesizlike yol açabileceğini göstermiştir, bu da neutrophil intrasyona dokulara yol açar, protease prodüksiyonunu arttırır ve hücre yaşlanmasını teşvik eder ve sonuçta ölüm sağlar. (57)maruz kalma sırasında, MCs, polipeptidlerin (OATP) taşınmasıyla farklı hücrelere girebilir. (58)Genlerin OATP ailesi neredeyse tüm organlarda tercüme edilebilir (20)Bazı OATP genleri özellikle dokularda veya seçici bir temelde daha sık ifade edilir. (59) Kalp dokusu istisna değildir (60)OATP4A1, OATP2A1, OATP2B1 ve OATP3A1 dahil olmak üzere birkaç OATP gen ailesini ifade etmek için gösterilmiştir. (61)Bu, MC'lerin kalp doku hücrelerine teslim ve konsantre olabileceğini gösteriyor, muhtemelen bu hücrelere bir tehdit sunuyor. Bununla birlikte, MC'lerin kardiyomiyositlere ulaştığı yöntemler araştırılıyor (62)Ayrıca, MCs, kan perfüzyon derecesinin ardından hücreye girer, OATP taşıyıcılarının türleri ve ifade seviyeleri (63).
Ağın en belirgin özelliği, maturasyon ve açlıktaki değişiklikler gibi birçok uyarana metabolik esnekliğidir. Uzun süreli patolojik durumlarda, kalp aynı zamanda metabolik yolları yeniden modelleme yeteneğine sahiptir, bu da myocardial enthalpies ve sözleşmesel performansları ve sözleşmesel performansları karşılaştırır. (64). Glutathione (GSH), her iki memelilerde ve su türlerinde önemli bir rol oynayan endojen bir detoxating moleküldür. GSH öncesi tedavi, daha önceki bir soruşturmada MCs'in zararlı etkilerini incelemek için bulundu. (65, 66).MC-LR-Cys ve mikrocystins-glutathione conjugates (MC-LR- GSH) fareler ve sıçanların kalplerinde keşfedildi (67).
Cardiotoxicity, MC-LR tarafından memelilerde
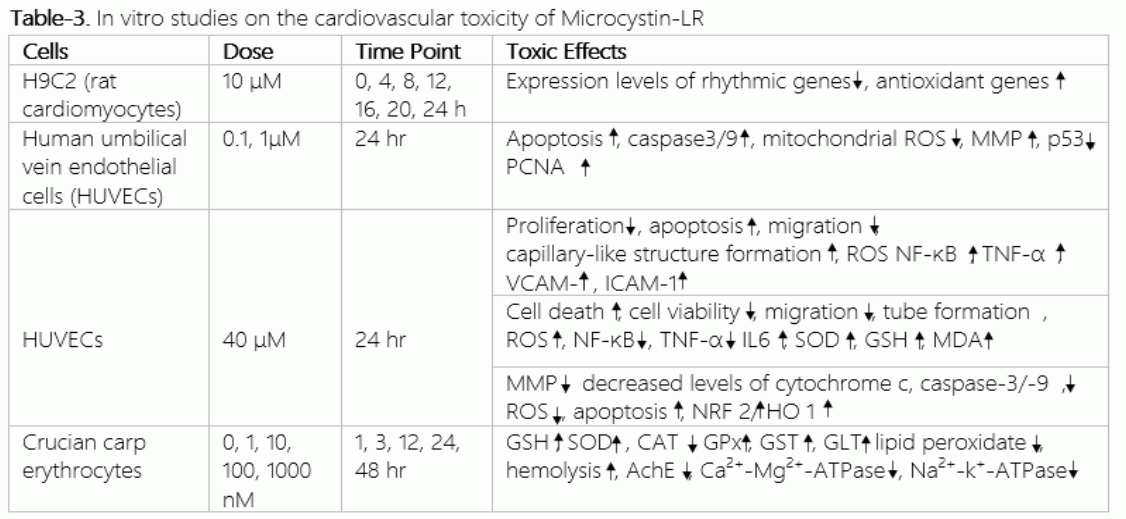
Kardiyoloji sistemi, kalp pompasının kanını oluşturan bir damar ve ven ağıdır. Çeşitli hücre türleri, kardiyomisitlerin ve myofilamentlerin MC-LR zehirlenmesinden etkilenen birincil hücreler ve organelles olduğu kalbini oluşturur. Cardiooksisite, her zamanatosit necrosis, cyto iskelet değişiklikleri ve hücre ölümleri ile sonuçlanan yüksek bir MC-LR konsantrasyonundan kaynaklanmaktadır. (68). MC-LR, maruz kaldıktan 24 saat sonra kardiyak hücrelerine zarar verir, bu da insan oksidatif stresle ilgili hastalıklara neden olur. (69)İnsanlar çeşitli şekillerde cyanotinolara maruz kalabilirler, ancak oral maruz kalma, özellikle de enfekte su içerek veya yemek yemenin zararlıdır. (70). Genetik, çevresel ve onların kardiyovasküler sistemin normal operasyonları üzerindeki etkileri kardiyovasküler hastalık (CVD) için önemli bir katkı faktörü olduğu düşünülmektedir. Numerous çalışmalar, MC'lerin Tablo 2 ve 3'te gösterilen kardiyovasküler sisteme zarar verebileceğini göstermiştir. MC'lere akut maruz kalmanın, mito iskelet ve mitokonominin disfonksiyonuna neden olduğu gösterilmiştir. MCs, yetişkinlerde myocardial deme ve fibrozya neden olabilir ve doğrudan Larva'da kardiyaformiteye neden olabilir. MCs, onların şekli, hücre gelişimi ve apoptoz, cytoskeleton ve ritmi, ultra yapı, oxidatif stres, membran potansiyel ve mikondriyal solunum zinciri enzim aktivitesi aktivite, (71)MC'ler kan dolaşımı aracılığıyla seyahat ettiğinde ve kalbine teslim edildiğinde, kalp zararlarına neden olabilirler.
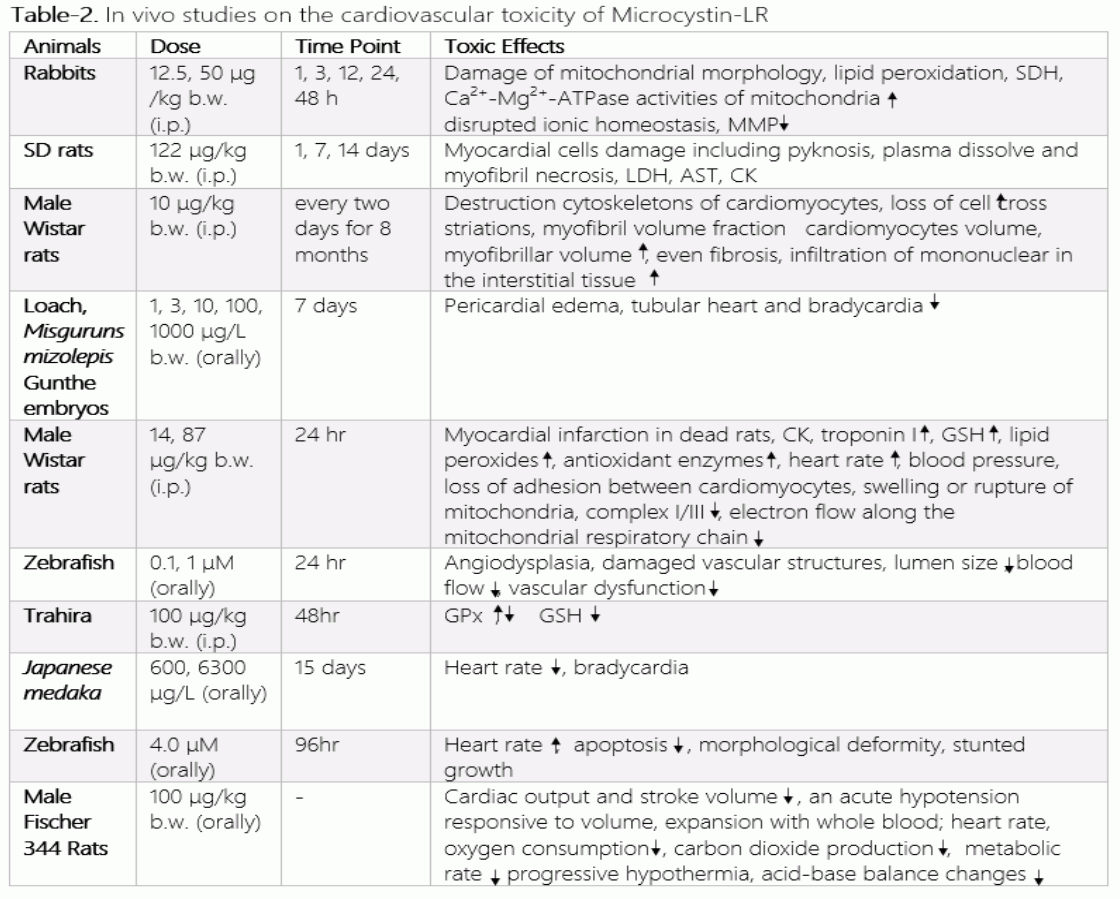
MC'lerin neden olduğu patofiziksel değişiklikler, inme hacmi ve kardiyak çıktısı, tüm kan basıncı ve kalp oranına karşı hipotansiyon cevabı, oksijen tüketimini azaltıp pankretik ve her zamanatik depolamanın işe alımını azalttı. (72)Bu, kardiyak tutuklama, hipovolemik şok ve hipotans içeren çeşitli hastalıklara yol açabilir. Vascular endothelial hücreler vasküler endotelyal dinamik dengenin önemli medyacılarıdır, çünkü hücre bölünmesini, vasküler osmolarity, enflamatuar yanıt ve plakalı aktiviteyi kontrol ediyorlar. (73)MC'nin büyük miktarlarda üretildiğinde, kan kapillerde önemli miktarda protein üretilir, periferik baskıya neden olur. Ayrıca, solunum zinciri enzimlerinin komplekslerinin baskı altında olduğunu ve mitokondriyal elektron taşıma zincirinin engellendiğini tespit ettiğini keşfedildi. lipid peroksit'in artan seviyeleri, kalp mikonomisinde morfolojik değişiklikler ve succinate dehidrojenaz aktivitesi kaydedildi. Concordl elektron taşıma zinciri, nicotinamid adenine dinükleotid dehidrojenase (NADH). Ayrıca, MCs, Ca2+- Mg2+-ATPase in Concord, ion homeostasis'i bozmak ve belki de mitokondriyal membran potansiyelinin kaybına yol açabilir (MMP) ve nihayetinde kardiyak hücrelerin mitozuunu kontrol etmeyi başarır (74). Karoksitoksisitenin iki etkisi, Concord'da kalp enerji gereksinimleri ve anormallikleri azaltmaktadır. Kardiyak hücrelerindeki Mitochondrial disfonksiyonu, MC-LR ile enjekte edildi ve MC-LR'ye maruz kalan zebrafishe kalp oranı, reaktif oksijen türü ve apoptoz birikimi ile ilişkiliydi. (75, 76).
MC-LR eylemleri Potansiyel mekanizması
OATP1B1, OATP1B2, OATP1B3 ve OATP1A2, özellikle de MC-LR absorpsiyonunda ve organ dokularında ifade edilen varyasyonlar vücuttaki sonuçlardır. Önceki çalışmalara göre, omiks teknolojileri kullanarak, çözünürlükin bastırılması ve son derece korunmuş protein serine/treonine phosphatase büyük ölçüde kabul edilen hücresel/moleküler işleme modu, toksit tarafından üretilen MC toksisitesinin meme ve balıkların işlenmesidir. (77)Protein phosphatase 1 (PP1) ve 2A (PP2A) öncelikle MCs tarafından engellenir ve alt proteinlerin dinamik dengelerinin bozulmasına neden olur. (78)MC'ler için potansiyel bir eylem mekanizması, hücresel proteinlerin hiperfobisinde sonuçları olan protein fosforlarının (PP) engellenmesidir. MC'lere yönelik Exposure, reaktif oksijen türlerinin aşırı üretimine de yol açabilir (ROS), bu da oxidatif hasara yol açar. Mikrocystins (MC)'lerin genooksi olduğuna dair hipotezleri desteklemek için yükseltilmiş kanıtlar var, çünkü Concord'un hücre döngüsünün ve mitozisin deregülasyonunda önemli bir rol oynadığını gösteriyorlar (Figure 4) (79)mammalian hücrelerde, PP genlerin, hücre sinyalleşmesi, hücre büyümesi ve hücre bölünmesinin ifadesini düzenler. (80)Çalışmalara göre, PP1 ve PP2A dephosphoryla Cav1.2 ve ATP-sensitive Na+/K+ kanalları da dahil olmak üzere çeşitli hedefli proteinleri kontrol etmek, sözleşme yeterliliklerini kontrol etmek için (81)PP2A-A subunit veya myocardium genişlemesi veya HF'nin değiştirilmesi, PP2B'nin neden olduğu keşfedildi. (82).
Sonuç Sonuç Sonuç
İnsan sağlığı riski MC maruz kalma yolları ve dozajlarla ilişkilendirilir. Kirlenmiş yiyecekler ve algal diyet takviyesinin tüketimi de maruz kalma modlarıdır, vücut temasları, respirasyon, embolizasyon ve içme suyu. Bununla birlikte, içme suyu içmenin ve MCs ile temasa geçtiği vurgulanmaktadır, maruz kalmanın çoğunluğuna neden olur.
Mikrocystin, birincil hedef organı olan karaciğer üzerinde olumsuz bir etkiye sahiptir, ayrıca gastrointestinal, beyin, renal, kardiyak, solunum ve üreme sistemi gibi diğer organlarda PP1, PP2A ve oxidative stres. OATP kanalları MC'leri birincil hedef organlar ve dokulara yoğunlaştıkları hücrelere taşırlar. MCs, PP1 ve PP2A'nın faaliyetlerini bastırma yeteneğine sahiptir ve bu nedenle transkriptiyon faktörlerinde sonuçlar doğurmaktadır, bu nedenle cytoskeleton dokusunu etkiler, gen ifadesi, hücre ölümü ve CVD. Hücrede viability ve apoptozda bir artış, yüksek düzeyde oksidatif stres ve ROS in the Concord and ER of blood cells and damar endothelial cells, aynı zamanda MC maruziyet nedeni olabilir. Kalp sistemi üzerinde doğrudan bir etkiye sahip olmanın yanı sıra, MCs, karaciğer, böbreklere ve gastrointestinal sisteme zarar vererek CVD'ye de neden olabilir. MC-LR'nin kardiyotoksisitesi ile savaşmak ve araştırma boşluğunu kapatmak için, standart bir hayvan modeli stratejisi hem de MC-LR'nin kronik ve akut toksik etkilerini kardiyotoksisitenin inandırıcı kanıtlarını sağlamak için araştırmak gerekir. MC-LR'nin kardiyotoksik etkisi hakkında çok fazla bilgi olmadığı için, kariojenik komplikasyonun rolü hala belirsizdir. Bu, daha fazla araştırmanın sadece MC-LR'nin kardiyooksit etkisi üzerine odaklandığı anlamına gelir.
Beyanlar
- Yazar katkıları (CRediT)
- Tüm yazarlar 14 CRediT rolünün tamamına eşit katkıda bulunmuştur (Conceptualization, Data curation, Formal analysis, Funding acquisition, Investigation, Methodology, Project administration, Resources, Software, Supervision, Validation, Visualization, Writing – original draft, Writing – review & editing).
- Fon desteği
-
This work was financially supported by a project from DST- SERB CRG/2018/003780 sanctioned to RKK.
- Çıkar çatışması
- The authors do not have any relevant conflicts of interest.
- Etik kurul onayı
- Ethics committee approval was not required for this article, as it is based on previously published literature and does not involve human participants, patient data or animals.
- Veri erişilebilirliği
- Data sharing is not applicable to this article as no new data were created or analysed in this study.
Kaynaklar (82)
82 kaynağın 75 tanesi DOI bağlantılı.
- Paerl HW, Paul VJ. Climate change: links to global expansion of harmful cyanobacteria. Water Res. 2012;46(5):1349-1363 DOI Crossref PubMed Google Scholar
- Wang Q, Xie P, Chen J, Liang G. Distribution of microcystins in various organs (heart, liver, intestine, gonad, brain, kidney and lung) of Wistar rat via intravenous injection. Toxicon. 2008;52(6):721-727 DOI Crossref PubMed Google Scholar
- Florczyk M, Lakomiak A, Wozny M, Brzuzan P. Neurotoxicity of cyanobacterial toxins. Environ Biotechnol. 2014;10 DOI Crossref PubMed Google Scholar
- Puddick J, Prinsep MR, Wood SA, Kaufononga SA, Cary SC, Hamilton DP. High levels of structural diversity observed in microcystins from Microcystis CAWBG11 and characterization of six new microcystin congeners. Mar Drugs. 2014;12(11):5372- DOI Crossref PubMed Google Scholar
- Cao L, Massey IY, Feng H, Yang F. A review of cardiovascular toxicity of microcystins. Toxins. 2019;11(9):507 DOI Crossref PubMed Google Scholar
- Wei H, Yang F, Wang Y, Zhou Y, Yan Y, Liang G, Yin L, Pu Y. Electrospun polymer nanofibres as solid-phase extraction sorbents for extraction and quantification of microcystins. Environ Technol. 2015;36(21):2796-2802 DOI Crossref PubMed Google Scholar
- Miller TR, Xiong A, Deeds JR, Stutts WL, Samdal IA, Lovberg KE, Miles CO. Microcystin toxins at potentially hazardous levels in algal dietary supplements revealed by a combination of bioassay, Immunoassay and Mass Spectrometric Methods. J Agr Food Chem. 2020;68(30):8016-8025 DOI Crossref PubMed Google Scholar
- Zegura B. An overview of the mechanisms of microcystin-LR genotoxicity and potential carcinogenicity. Mini Rev Med Chem. 2016;16(13):1042-1062 DOI Crossref PubMed Google Scholar
- Tokodi N, Drobac D, Meriluoto J, Lujic J, Marinovic Z, Vazic T, Lazic G, Petrovic T. Cyanobacterial effects in Lake Ludos, Serbia-Is preservation of a degraded aquatic ecosystem justified? Sci Total Environ. 2018; 635: 1047-1062 DOI Crossref PubMed Google Scholar
- Merel S, Walker D, Chicana R, Snyder S, Baures E, Thomas O. State of knowledge and concerns on cyanobacterial blooms and cyanotoxins. Environ Int. 2013; 59: 303-327 DOI Crossref PubMed Google Scholar
- Melaram R. Microcystins and daily sunlight: Predictors of chronic liver disease and cirrhosis mortality. J Environ Sci. 2019;3(3):379-388 DOI Crossref PubMed Google Scholar
- Meneely JP, Elliott CT. Microcystins: measuring human exposure and the impact on human health. Biomarkers. 2013;18(8):639-649 DOI Crossref PubMed Google Scholar
- Welten RD, Meneely JP, Elliott CT. A comparative review of the effect of Microcystin-LR on the proteome. Expos Health. 2019; 12: 1-19 DOI Crossref PubMed Google Scholar
- Feurstein D, Stemmer K, Kleinteich J, Speicher T, Dietrich DR. Microcystin congener-and concentration-dependent induction of murine neuron apoptosis and neurite degeneration. Toxicol Sci. 2011;124(2):424-431 DOI Crossref PubMed Google Scholar
- Vesterkvist PS, Misiorek JO, Spoof LE, Toivola DM, Meriluoto JA. Comparative cellular toxicity of hydrophilic and hydrophobic microcystins on Caco-2 cells. Toxins. 2012;4(11):1008-1023 DOI Crossref PubMed Google Scholar
- Puerto M, Pichardo S, Jos A, Camean AM. Comparison of the toxicity induced by microcystin-RR and microcystin-YR in differentiated and undifferentiated Caco-2 cells. Toxicon. 2009;54(2):161-169 DOI Crossref PubMed Google Scholar
- Song W, Rein K, Cruz Ad1, O'Shea K. Ultrasonically-induced degradation of Microcystin LR and RR: Identification of by products and effect of environmental factors. Adv Exp Med Biol. 2008; 619: 305 PubMed Google Scholar
- Xu S, Yi X, Liu W, Zhang C, Massey IY, Yang F, Tian L. A review of nephrotoxicity of Microcystins. Toxins. 2020;12(11):693 103 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Yang F, Wen C, Zheng S, Yang S, Chen J, Feng X. Involvement of MAPK/ERK1/2 pathway in microcystin-induced microfilament reorganization in HL7702 hepatocytes. J Toxicol Env Heal A. 2018;81(21):1135-1141 DOI Crossref PubMed Google Scholar
- Cao L, Huang F, Massey IY, Wen C, Zheng S, Xu S, Yang F. Effects of microcystin-LR on the microstructure and inflammation-related factors of jejunum in mice. Toxins. 2019;11(9):482 DOI Crossref PubMed Google Scholar
- Li X, Xu L, Zhou W, Zhao Q, Wang Y. Chronic exposure to microcystin-LR affected mitochondrial DNA maintenance and caused pathological changes of lung tissue in mice. Environ Pollut. 2016; 210: 48-56 DOI Crossref PubMed Google Scholar
- Hinojosa M, Gutierrez-Praena D, Prieto A, et al. Neuro toxicity induced by microcystins and cylindrospermopsin: A review. Sci Total Environ. 2019;668:547-565 PubMed Google Scholar
- Liu Y, Yang M, Zheng L, Nguyen H, Ni L, Song S, Sui Y. Antioxidant responses of triangle sail mussel Hyriopsis cumingii exposed to toxic Microcystis aeruginosa and thermal stress. Sci Total Environ. 2020; 743: 140754 DOI Crossref PubMed Google Scholar
- Massey IY, Wu P, Wei J, Luo J, Ding P, Wei H, Yang F. A mini-review on detection methods of microcystins. Toxins. 2020;12(10):641 DOI Crossref PubMed Google Scholar
- Alexander W. Branko furst's radical alternative: Is the heart moved by the blood, rather than vice Versa? P & T. 2017; 42(1):33-39 PubMed Google Scholar
- Guo Y, Pu WT. Cardiomyocyte maturation: New phase in development. Circ Res. 2020;126(8):1086-1106 PubMed Google Scholar
- Squire J. The actin-myosin interaction in muscle: Background and overview. Int J Mol Sci. 2019; 20: 5715 PubMed Google Scholar
- Ishii S, Oyama K, Shintani SA, Kobirumaki-Shimozawa F, Ishiwata SI, Fukuda N. Thermal activation of thin filaments in striated muscle. Front Physiol. 2020; 11: 278 DOI Crossref PubMed Google Scholar
- Rios E. Calcium-induced release of calcium in muscle: 50 years of work and the emerging consensus. J Gen Physiol. 2018;150(4):521-537 DOI Crossref PubMed Google Scholar
- Van Meer BJ, Krotenberg A, Sala L, Davis RP, Eschenhagen T, Denning C, Tertoolen LG, Mummery CL. Simultaneous measurement of excitation -contraction coupling parameters identifies mechanisms underlying contractile responses of hiPSC-derived cardiomyocytes. Nat commun. 2019;10(1):1-9 DOI Crossref PubMed Google Scholar
- Baudino TA, Carver W, Giles W, Borg TK. Cardiac fibroblasts: friend or foe? Am J Physiol-Heart C. 2006;291(3):H1015-H1026 DOI Crossref PubMed Google Scholar
- Talman V, Kivela R. Cardiomyocyte-endothelial cell interactions in cardiac remodeling and regeneration. Front Cardiovasc Med. 2018; 5: 101 DOI Crossref PubMed Google Scholar
- Jourde-Chiche N, Fakhouri F, Dou L, Bellien J, Burtey S, Frimat M, Jarrot PA, Kaplanski G, Le Quintrec M, Pernin V. Endothelium structure and function in kidney health and disease. Nat Rev Nephrol. 2019;15(2):87-108 DOI Crossref PubMed Google Scholar
- Milutinovic A, Zorc Pleskovic R, Petrovic D, Zorc M, Suput D. Microcystin-LR induces alterations in heart muscle. Folia Biol. 2006; 52: 116-118 DOI Crossref PubMed Google Scholar
- Zhang H, Zhang J, Chen Y, Zhu Y, 2007. Influence of intracellular Ca2+, mitochondria membrane potential, reactive oxygen species, and intracellular ATP on the mechanism of microcystin‐LR induced apoptosis in Carassius auratus lymphocytes in vitro. Environ. Toxicol. 2007; 22: 559-564 DOI Crossref PubMed Google Scholar
- Chen QM, Tu VC, Purdom S, Wood J, Dilley T, 2001. Molecular mechanisms of cardiac hypertrophy induced by toxicants. Cardiovasc. Toxicol. 2001; 1: 267-283 DOI Crossref PubMed Google Scholar
- Goodenough DA, Paul DL. Gap junctions. Csh Perspect Biol. 2009;1(1): a002576 PubMed Google Scholar
- Wang Y, Wang C, Ma J. Role of cardiac endothelial cell-derived MicroRNAs in cardiac remodeling. Discov Med. 2019; 28(152): 95-105 PubMed Google Scholar
- Severs NJ, Bruce AF, Dupont E, Rothery S. Remodelling of gap junctions and connexin expression in diseased myocardium. Cardiovasc Res. 2008;80(1):9-19 DOI Crossref PubMed Google Scholar
- Bacova BS, Vinczenzova C, Zurmanova J, Kasparova D, Knezl V, Benova TE, Pavelka S, Soukup T, Tribulova N. Altered thyroid status affects myocardial expression of connexin -43 and susceptibility of rat heart to malignant arrhythmias that can be partially normalized by red palm oil intake. Histochem Cell Biol. 2017;147(1):63-73 DOI Crossref PubMed Google Scholar
- Delmar M, Makita N. Cardiac connexins, mutations and arrhythmias. Curr Opin Cardiol. 2012;27(3):236-241 DOI Crossref PubMed Google Scholar
- Van Norstrand DW, Asimaki A, Rubinos C, Dolmatova E, Srinivas M, Tester DJ, Saffitz JE, Duffy HS, Ackerman MJ. Connexin43 mutation causes heterogeneous gap junction loss and sudden infant death. Circulation. 2012;125(3):474-481 DOI Crossref PubMed Google Scholar
- Jeong MH, Kim HJ, Pyun JH, Choi KS, Lee DI, Solhjoo S, O'Rourke B, Tomaselli GF, Jeong DS, Cho H. Cdon deficiency causes cardiac remodeling through hyperactivation of WNT/β-catenin signaling. P Natl A Sci. 2017;114(8): E1345-E1354 DOI Crossref PubMed Google Scholar
- Kontaridis MI, Geladari EV, Geladari CV. Structural alterations in the hypertensive heart disease result in intercalated disc remodeling and arrhythmias. In: Hypertension and Cardiovascular Disease. Springer. 2016 DOI Crossref PubMed Google Scholar
- Zhou M, Tu WW, Xu J. Mechanisms of microcystin-LR-induced cytoskeletal disruption in animal cells. Toxicon. 2015; 101: 92-100 DOI Crossref PubMed Google Scholar
- Alosman M, Cao L, Massey IY, Yang F., 2021. The lethal effects and determinants of microcystin-LR on heart: A mini review. Toxin Rev. 2021; 40: 517-526 DOI Crossref PubMed Google Scholar
- Sztormowska-Achranowicz K, Jankowski Z, Kocic I. Protective effect of nicotinamide and L-arginine against monocrotaline-induced pulmonary hypertension in rats: gender dependence. Pharmacol Rep. 2020;72(5):1334-1346 DOI Crossref PubMed Google Scholar
- Ziolo MT, Kohr MJ, Wang H. Nitric oxide signalling and the regulation of myocardial function. J Mol Cell Cardiol. 2008;45(5):625-632 DOI Crossref PubMed Google Scholar
- Lone Y, Bhide M, Koiri RK. Amelioratory effect of coenzyme Q10 on potential human carcinogen Microcystin-LR induced toxicity in mice. Food Chem. Toxicol. 2017; 176-185 DOI Crossref PubMed Google Scholar
- Bencivenga L, Liccardo D, Napolitano C, Visaggi L, Rengo G, Leosco D. β-adrenergic receptor signaling and heart failure: From Bench to Bedside. Heart Fail Clin. 2019;15(3):409-419 104 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Bononi A, Agnoletto C, De Marchi E, Marchi S, Patergnani S, Bonora M, Giorgi C, Missiroli S, Poletti F, Rimessi A, Pinton P. Protein kinases and phosphatases in the control of cell fate. Enzyme Res. 2011;329098 DOI Crossref PubMed Google Scholar
- Chasseigneaux S, Moraca Y, Cochois-Guegan V, Boulay AC, Gilbert A, Le Crom S, Blugeon C, Firmo C, Cisternino S, Laplanche JL. Isolation and differential transcriptome of vascular smooth muscle cells and mid-capillary pericytes from the rat brain. Sci Rep. 2018;8(1):1-12 DOI Crossref PubMed Google Scholar
- Wheeler-Jones CP. Cell signalling in the cardiovascular system: an overview. Heart. 2005;91(10):1366-1374 DOI Crossref PubMed Google Scholar
- Mehta PK, Griendling KK. Angiotensin II cell signaling: physiological and pathological effects in the cardiovascular system. Am J Physiol Cell Physiol. 2007;292(1):C82-C97 DOI Crossref PubMed Google Scholar
- Barreras A, Gurk-Turner C. Angiotensin II receptor blockers. Proceedings (Baylor University Medical Cn). 2003;16(1):123-126 DOI Crossref PubMed Google Scholar
- Varga I, Kyselovic J, Galfiova P, Danisovic L. The non-cardiomyocyte cells of the heart. Their possible roles in exercise- induced cardiac regeneration and remodeling. In: Exercise for Cardiovascular Disease Prevention and Treatment. Springer. 2017 DOI Crossref PubMed Google Scholar
- Zhang J, Xie Y, Fan Q, Wang C. Effects of karanjin on dimethylhydrazine induced colon carcinoma and aberrant crypt foci are facilitated by alteration of the p53/Bcl2/BAX pathway for apoptosis. Biotech Histochem. 2020:1-11 DOI Crossref PubMed Google Scholar
- Steiner K, Zimmermann L, Hagenbuch B, Dietrich D. Zebrafish Oatp- mediated transport of microcystin congeners. Arch Toxicol. 2016;90(5):1129-1139 DOI Crossref PubMed Google Scholar
- Li TT, An JX, Xu JY, Tuo BG. Overview of organic anion transporters and organic anion transporter polypeptides and their roles in the liver. World J Clin Cases. 2019;7(23):3915 DOI Crossref PubMed Google Scholar
- Moraes JG, Behura SK, Geary TW, Spencer TE. Analysis of the uterine lumen in fertility-classified heifers: I. Glucose, prostaglandins, and lipids. Biol Reprod. 2020;102(2):456-474 DOI Crossref PubMed Google Scholar
- Bakos E, Tusnady GE, Nemet O, Patik I, Magyar C, Nemeth K, Kele P, Ozvegy-Laczka C. Synergistic transport of a fluorescent coumarin probe marks coumarins as pharmacological modulators of Organic anion-transporting polypeptide, OATP3A1. Biochem Pharmacol. 2020; 182: 114250. DOI Crossref PubMed Google Scholar
- Foss AJ, Aubel MT, Gallagher B, Mettee N, Miller A, Fogelson SB. Diagnosing microcystin intoxication of canines: Clinicopathological indications, pathological characteristics, and analytical detection in postmortem and antemortem samples. Toxins. 2019;11(8):456 DOI Crossref PubMed Google Scholar
- Valerio E, Barreiros S, Rodrigues S, Turkina MV, Vasconcelos VM, Campos A: New insights in Saccharomyces cerevisiae response to the cyanotoxin Microcystin-LR, revealed by proteomics and gene expression. Toxins. 2020;12(10):667 DOI Crossref PubMed Google Scholar
- Kolwicz Jr SC, Purohit S, Tian R. Cardiac metabolism and its interactions with contraction, growth, and survival of cardiomyocytes. Circ. Res. 2013; 113: 603-616 DOI Crossref PubMed Google Scholar
- Guzman- Guillen R, Puerto M, Gutierrez-Praena D, Prieto AI, Pichardo S, Jos A, Campos A, Vasconcelos V, Camean AM. Potential use of chemoprotectants against the toxic effects of cyanotoxins: A review. Toxins. 2017;9(6):17 DOI Crossref PubMed Google Scholar
- Hermansky S, Stohs S, Eldeen Z, Roche VF, Mereish K. Evaluation of potential chemoprotectants against microcystin‐ LR hepatotoxicity in mice. J Appl Toxicol. 1991;11(1):65-73 DOI Crossref PubMed Google Scholar
- Buckingham M, Meilhac S, Zaffran S. Building the mammalian heart from two sources of myocardial cells. Nat Rev Genet. 2005;6(11):826-835 DOI Crossref PubMed Google Scholar
- McLellan NL, Manderville RA: Toxic mechanisms of microcystins in mammals. Toxicol Res. 2017;6(4):391-405 DOI Crossref PubMed Google Scholar
- Martins ND, Colvara WA, et al. Microcystin-LR: how it affects the cardio-respiratory responses to hypoxia in Nile tilapia, Oreochromis niloticus. Chemosphere. 2011;84(1): 154-159 DOI Crossref PubMed Google Scholar
- Funari E, Testai E. Human health risk assessment related to cyanotoxins exposure. Crit Rev Toxicol. 2008; 38: 97-125 DOI Crossref PubMed Google Scholar
- Vecoli C, Pulignani S, Foffa I, Grazia Andreassi M. Congenital heart disease: the crossroads of genetics, epigenetics and environment. Curr genomics. 2014; 15: 390-399 DOI Crossref PubMed Google Scholar
- Lone Y, Bhide M, Koiri RK. Amelioratory effect of coenzyme Q10 on potential human carcinogen microcystin-LR induced toxicity in mice. Food Chem Toxicol. 2017; 102: 176-185 DOI Crossref PubMed Google Scholar
- Curry FRE, Adamson RH. Vascular permeability modulation at the cell, microvessel, or whole organ level: towards closing gaps in our knowledge. Cardiovasc Res. 2010;87(2):218-229 DOI Crossref PubMed Google Scholar
- Liu Y, Song L, Li X, Liu T. The toxic effects of microcystin-LR on embryo-larval and juvenile development of loach, Misguruns mizolepis Gunthe. Toxicon. 2002;40(4):395-399 DOI Crossref PubMed Google Scholar
- Diez-Quijada Jimenez L, Medrano Padial C, Llana Ruiz-Cabello M, Catunescu GM, Moyano Salvago R, Risalde Md1A, Camean Fernandez AM, Jos Gallego AM. Cylindrospermopsin - microcystin-LR combinations may induce genotoxic and histopathological damage in rats. Toxins. 2020; 12: 348 DOI Crossref PubMed Google Scholar
- Zeng C, Sun H, Xie P, Wang J, Zhang G, Chen N, Yan W, Li G. The role of apoptosis in MCLR-induced developmental toxicity in zebrafish embryos. Aquat Toxicol. 2014;149:25-32 DOI Crossref PubMed Google Scholar
- Buratti FM, Manganelli M, Vichi S, Stefanelli M, Scardala S, et al. Cyanotoxins: producing organisms, occurrence, toxicity, mechanism of action and human health toxicological risk evaluation. Arch Toxicol. 2017;91(3):1049-1130 DOI Crossref PubMed Google Scholar
- Massey IY, Yang F, Ding Z, Yang S, Guo J, l-Osman M, Kamegni RB, Zeng W. Exposure routes and health effects of microcystins on animals and humans: A mini-review. Toxicon. 2018; 151: 156-162 DOI Crossref PubMed Google Scholar
- Chen L, Xie P. Mechanisms of microcystin -induced cytotoxicity and apoptosis. Mini Rev Med Chem. 2016;16(13): 1018-1031 DOI Crossref PubMed Google Scholar
- Samarasimhareddy M, Mayer D, Metanis N, Veprintsev D, Hurevich M, Friedler A. A targeted approach for the synthesis of multi- phosphorylated peptides: a tool for studying the role of phosphorylation patterns in proteins. Org Biomol Chem. 2019;17(42):9284-9290 DOI Crossref PubMed Google Scholar
- Heijman J, Ghezelbash S, Wehrens XH, Dobrev D. Serine/threonine phosphatases in atrial fibrillation. J Mol Cell Cardiol. 2017; 103:110-120 105 77 Effect of MC-LR on the Heart of Mammals Roshni Rajpoot & Raj Kumar Koiri DOI Crossref PubMed Google Scholar
- Gergs U, Kirchhefer U, Bergmann F, Kunstler B, Miblinger N, Au B, Mahnkopf M, Wache H, Neumann J. Characterization of stressed transgenic mice overexpressing H2-histamine receptors in the heart. J Pharmacol Exp Ther. 2020;374(3):479- DOI Crossref PubMed Google Scholar
Tam metni okuyun
PDF'yi burada aç
PDF yükleniyor…
PDF burada görünmezse yukarıdaki indirme düğmesini kullanın.
Bu makaleye nasıl atıf yapılır
Rajpoot R, Koiri RK. Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals. Ulutas Med J. 2023;9(2):92-105. doi:10.5455/umj.20221222071638
Rajpoot, R., & Koiri, R. K. (2023). Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals. The Ulutas Medical Journal, 9(2), 92–105. https://doi.org/10.5455/umj.20221222071638
Rajpoot, R. and Koiri, R.K. (2023) 'Profoundal Effects of Microcystin-LR Induced Cardiotoxicity in Mammals', The Ulutas Medical Journal, 9(2), pp. 92–105. doi: 10.5455/umj.20221222071638.