The Ulutas Medical Journal · ISSN 2149-0430 (basılı), 2149-388X (çevrimiçi) · https://www.ulutasmedicaljournal.com/?mno=268878
Derleme · Açık erişim
Vascular Endothelial Büyüme Faktörünün Rolü ve Hepatocellular Carcinoma'da Büyüme Faktörünü Dönüştürmek
Başlık, özet ve tam metin makine çevirisidir. İngilizce aslı
- Biochemistry Lab, Department of Zoology, Dr. Harisingh Gour Central University, Sagar - 470003, Madhya Pradesh, India ROR
Özet
Hepatocellular karsinoma, dünya çapında en yaygın malign tümörden biridir ve ölüm nedenidir. Tumor genleri, tümör stroma'dan gelen sinyaller, enflamatuar hücreler ve hipoxia angiogenez üzerinde geçiş rapor edilmiştir. Vascular endotelyal büyüme faktörü, hücre proliferasyonunu düzenleyen, vaskül edilebilirliği düzenleyen ve farklı anjigenojen reseptörleri aracılığıyla tümör anjiyojeninde önemli bir rol oynar. Çok işlevli düzenleyici cytokine büyüme faktörünü dönüştürür - aynı zamanda hücre proliferasyonunu, farklılaşmayı, ekstracellular matris üretimini ve hayatta kalma / veya birçok hücreli hücrelerinpoptozunu kontrol eder. Epithelial-mesenchymal geçişi seviyesini yükselterek, büyüme faktörü-LR, tümör hücre büyümesi için elverişli bir mikroenvironment yaratır. Kanser ilerlemesi aşamasına bağlı olarak, tümör gelişimi, ilerleme ve metastasis başlatabilir veya bir tümör baskıcı olarak hareket edebilir. Mevcut incelemede, Vascular Endothelial Büyüme Faktörünün rolünü kapsamlı bir şekilde tanımlamak ve her zamanatocellular karsinoma'nın geliştirilmesi ve ilerlemesinde büyüme faktörünü dönüştürmek için bir girişim yapılmıştır.
Anahtar kelimeler
Tam metin
Tam metnin makine çevirisidir; geçerli sürüm İngilizce asıldır. İngilizce aslı
Giriş Giriş
Heratocellular karsinoma (HCC) dünya çapında en yaygın yedinci kanser olarak ve kanserle ilgili ölümlerin üçüncü nedeni olarak rapor edilmiştir. (1)Yüksek ölüm oranı, özellikle gelişmiş aşamalarında etkili tedavi seçenekleri eksikliği nedeniyle HCC hastalarında gözlemlenmiştir. Ameliyat ve percutaneous ablasyon erken HCC olan hastalarda uzun vadeli kontrol elde edebilir olsa da, recurrence oranları yüksek (yaklaşık% 50 3 yıl)(2)Dahası, erken HCC'nin asemptomatik doğası nedeniyle, farkındalık eksikliği ve kötü tanımlanmış tarama stratejileri, çoğu hasta (yaklaşık% 80) gelişmiş veya güvensiz olmayan hastalık ile mevcut (3).
HCC ile ilişkili Etiolojik faktörler kronik karaciğer hastalıkları, hepatit virüsü (HBV & HCV) ve alkolizm içerir. karaciğer cirrhozinin tümör gelişimi için büyük risk faktöründen biri olarak ortaya çıktığı ve HCC ile hastaların neredeyse %80'inin bu aşamadan önce geliştiği gözlemlendi. (4). Dahası, aflatoksik, Hepatit C virüsü (HCV) indüklenen karaciğer kanseri kanseri kanseri kanseri üzerinde sinerjik bir etkiye sahip olduğu bildirildi. (5)Epidemiyolojik araştırmalardan, AFB1 ile gıda kirliliğinin insan karaciğer kanseri kanseri için önemli risk faktörü olduğu açıktır. (6, 7).
HCC, aşırı derecede vasküler bir tümör büyümesi olarak kabul edilir ve yeni kan damarlarının büyümesi olan angiogenesis'e bağlıdır. Patogeneziler ve kanserin prevazif ve uykulu formdan invazif ve metastatik aşamaya kadar ilerlemesi sırasında anjiyojenik faktörlere tümör büyümesi, işgal ve metastasis için gerekli olan kritik bir rol oynamaya gözlemlenmiştir. Multipl çalışma, tümör vaskülerliğinin derecesinin hastalık aşamasıyla olumlu ilişkili olduğunu göstermiştir, metastazların olasılığı ve kanser recurrences (8).
Vascular endotelyal büyüme faktörü (VEGF), endotelal hücre majen özelliği nedeniyle HCC'de neovaskülerizasyonu ve endotel hücre çoğalmasını teşvik eden iyi bir anjiojenik faktördür. (9). VEGF'ye ek olarak, karaciğer hastalıklarının gelişimi sırasında, büyüme faktörü-b (TGF-b) lezyonlarında önemli bir rol oynadığı bildirildi. (10)Normal karaciğer TGF-LR, hepotosit hücre büyümesine rağmen, yaralı karaciğerlerde aktif hale gelmeleri ve heratcellular karsiomasinin geliştirilmesini teşvik etmesi gözlemlendi. (11)Kanser ilerlemesi sırasında, TGF-LR sinyalleme aktivasyonu TGF-LR liginin sadakatine ve hücre membranı üzerindeki reseptöre yol açıyor. (12).
Agiogenesis Biomarkers of Hepatocellular Carcinoma
1989 yılında ilk kez açıklanmadı. (13)VEGF protein ailesi şu anda birkaç üyeden oluşmaktadır: VEGF (veya VEGF-A), VEGF-B, VEGF-C ve VEGF-D, VEGF-F,placental büyüme faktörü (PlGF), ve reseptörleri VEGFR-1, VEGFR-2 ve VEGFR-3 (14). VEGF bir ligand of the VEGF tyrosine kinase reseptör süperailesi ve VEGF-A, -B, -C ve -D, VEGF-A'nın birçok farklı türü ile sonuçlandı (15, 16).
VEGF ailesi ligands tyrosine kinase reseptörleri VEGFR1, VEGFR2 ve VEGFR3 (Figure-1); her reseptör yaklaşık 750 amino asit kalıntılarının ekstra bir alanı içerir, katlar gibi yedi immünglobulin içinde düzenlenir (17)Ek olarak, heparin sulphate proteo-glycans (HSPGs) ve nöropilins (NRP-1 ve NRP-2) VEGF için temelceptors olarak hareket edebilir ve VEGFR aktivasyonunu sağlayabilir (18, 19). VEGF/VEGFR yolu, yerel çevresel hipotez, çeşitli hormonlar, büyüme faktörleri ve cytokines gibi birçok faktör tarafından etkileniyor ve düzenlenir. Türbeler gibi Hor-mones stromal hücre ve malign hücre VEGF üretimi ve angiogenez, prostat kanseri büyüme büyüme büyüme (20, 21).
VEGF ana anjiojenik büyüme faktörü olarak tanımlanmıştır ve ifade seviyesi anjiojenik hastalıkların tanımlanmasında biyomarker olarak kullanılmıştır. VEGF'in ekspresyon seviyesi HCC'nin ilerleme ve patogenezileri ile artmakta ve kanserin gelişmiş aşamalarında çok yüksek olduğu bildirildi. Neovaskülerizasyon nedeniyle sağlam tümörlerde, VEGF sürekli beslenme akışını tedarik ederek tümör büyümesini ve metastasislarını kolaylaştırmaktadır ve ifadesi tümör ilerlemesi ile ilişkilidir. (22)HCC'deki önemli anjiojenik faktörden biri olarak tespit edilmiştir. Onun ifadesi, düşük dereceli displastik nodules'ten yüksek dereceli displastik nodules'den erken HCC'ye kadar artmakta olduğu bildirildi. (23)HCC'nin erken aşamalarında, HCC'nin yüksek seviyesi mikro vasküler yoğunlukla ilişkili olarak gözlemlendi, boş olmayan arterler (örneğin, preducts, indicative of angiogenesis) ve CD34 lekeli bir sinüsoidal capillarizasyon işareti olarak eşlik etmediler. (23). VEGF-C gen polimorphism, aşırı ifadeye yol açan, HCC'de sık sık meydana gelen neo-angiogenez ve hücre durumu olmuştur ve HCC'nin gelişmiş formlarına kıyasla gözlemlenmiştir. (23)Geliş sırasında VEGF ifadesi derecesi HCC'nin gelişmiş aşaması için öngörülebilir bir faktör olması önerilmiştir. (24).
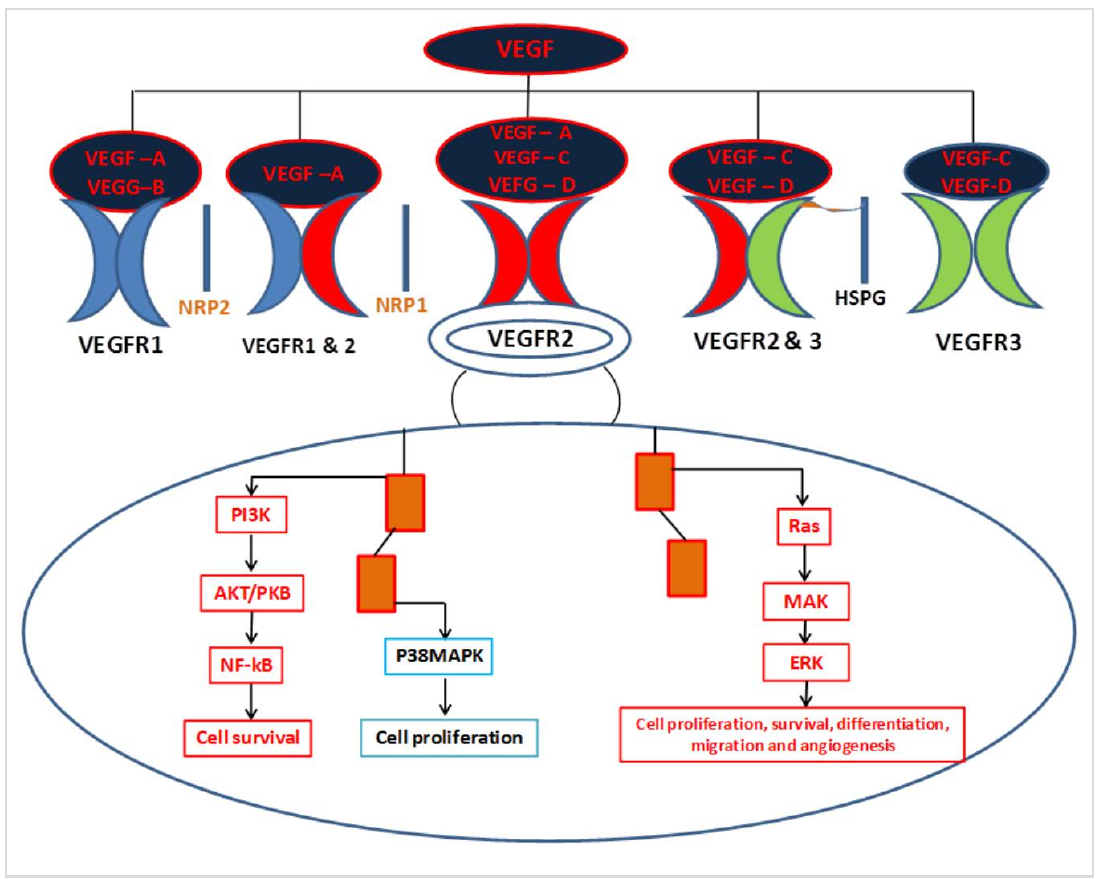
VEGF, neoangiogenez, gelişim ve / veya ilerleme / HCC tumourourourourourourourourourourour (25) Ve HCC hastaları serum ve dokudaki VEGF'in aşırı ifadesi ile fakir hayatta kalma oranıyla ilişkilendirilmiştir (26). VEGF yeni mikrovesellerin oluşumu, çeşitli insan sağlam tümörlerinin gelişimi ve ilerlemesi için kritiktir, oksijen ve besinlerin hızla büyüyen tümörlere iletilmesine olanak sağlar. (27)Bu hızlı büyüyen tümörlerden bazıları aynı zamanda angiopoietins'i de gizliyor. (28).
Tumor Suppressive ve Onkojenik Fonksiyonlar HCC'de
TGF-LR, hücre çoğalması, farklılaşma ve ekstracellular matris üretimi gibi birden çok işlevi olan bir cytokinedir. (29)TGF-LR ifadesi veya sinyallemenin Deregülasyonu, kanser ve fibroz dahil çeşitli hastalıkların patogenezinde karmaşıklaşmıştır. TGF-LR'nin ekspresyonu, daha sonraki kanser gelişimi sırasında dramatik bir şekilde artış gösteren çok düşüktü ve bu nedenle, sadece bir ansikloped olarak hareket etmiyor, ancak hücre büyümesi, işgal, metastasis ve daha ileri aşamalar sırasında host-tumor bağışıklık yanıtını azaltır. (30)TGF-LR, büyük bir gizli protein ailesinin prototypic üyesidir, bu da iki subfamilies'ye daha fazla bölünmüş olabilir, aktive ettikleri sinyal yollarına bağlı olarak - TGF-LR/Activin/Nodal subfamily ve Bone Morgenetici (BMP) subfamily (31).
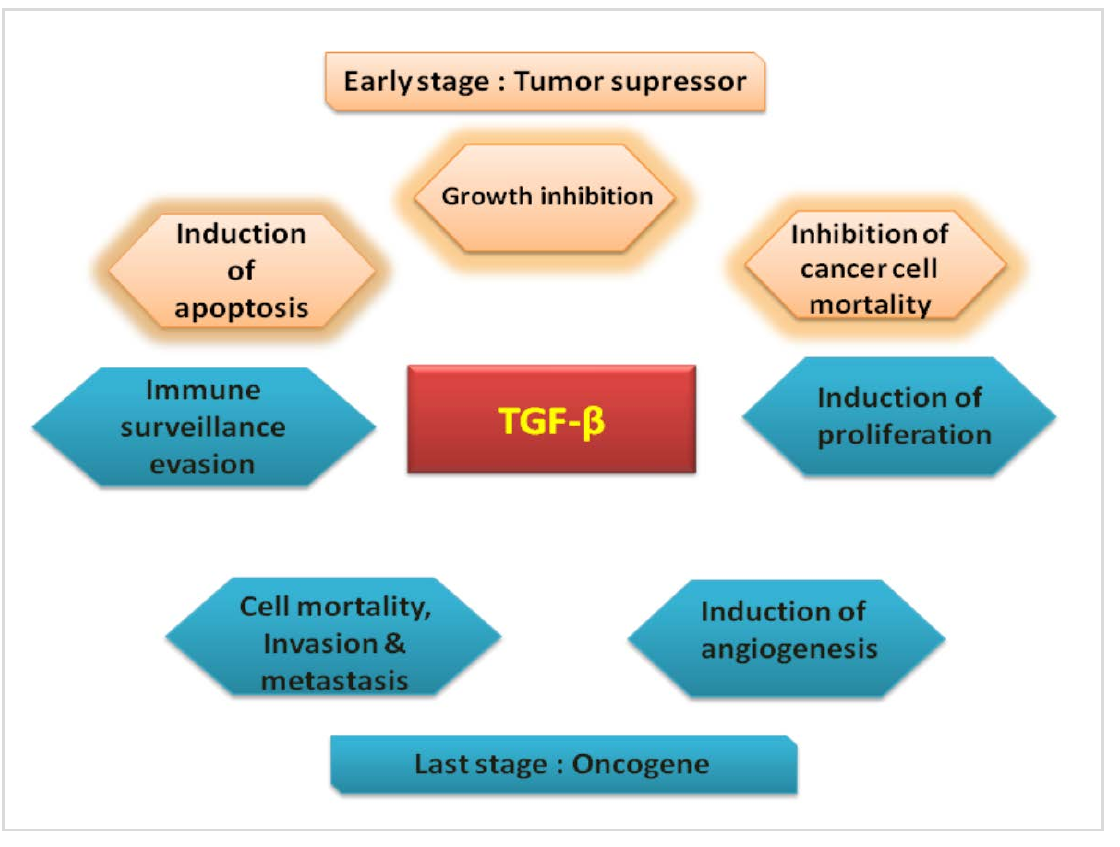
TGF-LRs, tümör başlangıcını, ilerlemeyi ve metastatik gelişimini düzenleyebilir. TGF-LR'lerin hem de tümör teşvikleri olarak hareket ettiği yaygın olarak kabul edilir, kanser türüne ve tümör gelişim zamanlamasına bağlı olarak. (32, 33)tümör gelişiminin erken aşamasında, TGF-LR1, epithelial hücrelerin çoğalmasını engelleme yeteneği nedeniyle bir tümör baskılayıcı olarak eylemleri rapor edilmiştir. Ayrıca, G1 hücre döngüsü, p21Cip1 ve p15lnk4b ve p15lnk4b ve p15lnk4b gibi CDK inhibitörlerinin ifadelerini azaltmak için de olabilir. (34, 35). TGF-LR, tümör teşvikleyicisi (Figure 2) ile aynı zamanda, kontraseptifin iki rolünü oynamak için rapor edilmiştir. TGF-LR'nin HCC ifadesi, kolajen depozisyon ile uzlaşma ve proteoolitik bozulmadaki azalmayı artırmak için rapor edilmiştir. (36).
TGF-LR'nin baskıcı işlevi, Smad4, TLRRI veya TLRRI (TGF- tipi II reseptör) midenin kanserleri, kolon, prostat, meme, akciğer, karaciğer ve pankreas gibi birçok malgnancide görülür. (37, 38)TGF-LR'nin çift rolü, HCC'nin gelişimi ve ilerlemesi sırasında karaciğerin epitel hücresinde gözlemlenmiştir. İlk aşamada, HCC'ye gelişmiş susceptability nedeniyle, TGF- tipi II reseptör (TLRRII) ektopik ifade nedeniyle HCC'ye kıyasla oldukça belirgindir. (39) veya heterozygous farelerde TLRRII ifadesini azaltın, TGF-LR sinyalling yolwayway (40).
Epithelial hücrelerden ortaya çıkan kanserlerin çoğunda, TGF-LR, ilişkili protein kinase (DAP) gibi proapoptotik proteinlerin indüksiyonu yoluyla birpoptozu aktive ediyor. (41)Protrary to this ifade in case of prostat and colorectal kansers, TGF-LR1 in kanser hücrelerinin ifadesi ilerleme ve metastasis ile güçlü bir şekilde ilişkili bulundu. (42–44)En yaygın olarak TGF-LR yolu genleri TGFBR2, TGFBR1, SMAD4 ve SMAD2 olmak.
Sonuç Sonuç Sonuç
HCC, kanser gelişimi ve ilerleme sürecine dahil olabilecek çok sayıda moleküler anormallik sunuyor. Bu nedenle, özellikle erken aşamalarda HCC ile hastalar için uygun bir seçim kriteri yapılması önemlidir. HCC dahil çeşitli tümörlerde, kanser hücrelerinin yerel işgali veya metastasisların distal kısımların gerçekleştiği durumlarda, anjigenez yoluyla kanda yüksek miktarda VEGF vardır. TGF-LR'nin daha fazla tümör baskıcı işlevi önemli bir rol oynar. Böylece, hem VEGF hem de TGF-LR, farklı mekanizma yoluyla HCC'de ekstra hücreli matrix ve immün baskının anjiografisini, tümör ilerlemesini ve üretimini düzenler. Böyle bir senaryoda, VEGF ve TGF-LR yolunu daha iyi anlamak, HCC'deki kanser hücrelerinin geliştirilmesine yol açacaktır. TGF-LR'nin malign dönüşümü ile ilgili kesin mekanizmalar açık değildir ve tedavi noktası ile gelecekteki araştırmalara tabi değildir.
Beyanlar
- Yazar katkıları (CRediT)
- Tüm yazarlar 14 CRediT rolünün tamamına eşit katkıda bulunmuştur (Conceptualization, Data curation, Formal analysis, Funding acquisition, Investigation, Methodology, Project administration, Resources, Software, Supervision, Validation, Visualization, Writing – original draft, Writing – review & editing).
- Fon desteği
-
Funding information was not reported in the published version of this article.
- Çıkar çatışması
- The authors declare that there is no conflict of interests.
- Etik kurul onayı
- Ethics committee approval was not required for this article, as it is based on previously published literature and does not involve human participants, patient data or animals.
- Veri erişilebilirliği
- Data sharing is not applicable to this article as no new data were created or analysed in this study.
Kaynaklar (44)
44 kaynağın 36 tanesi DOI bağlantılı.
- Simbaqueba Ferlay J, Shin HR, Bray Forman FD, Mathers C, Parkin DM. Estimates of worldwide burden of cancer in 2008: GLOBOCAN 2008, Int J Cancer 2010;127: 2893– 2917. DOI Crossref PubMed Google Scholar
- Mulcahy MF. Management of hepatocellular cancer. Curr Treat Options Oncol 2005;6: 423–435. DOI Crossref PubMed Google Scholar
- Thomas MB, Abbruzzese JL. Opportunities for targeted therapies in hepatocellular carcinoma. J Clin Oncol 2005;23: 8093– 8108. DOI Crossref PubMed Google Scholar
- Minguez B, Tovar V, Chiang D, Villanueva A, Llovet JM. Pathogenesis of hepatocellular carcinoma and molecular therapies. Curr Opin Gastroenterol 2009;25: 186-194. DOI Crossref PubMed Google Scholar
- 5. Kirk GD, Lesi OA, M Mendy et al. 249 (ser) P53 mutation in plasmid DNA, hepatitis B viral infection, and risk of hepatocellular carcinoma. Oncogene 2005;24:5858 5867. PubMed Google Scholar
- Li Y, SU JJ, Qin LL, Yang C, Ban KC, Yan RQ. Synergistic effect of hepatitis B virus and aflatoxin B1 in hepato carcinogenesis in tree shrews. Ann Acad Med Singapore 1999;28: 67-71. DOI Crossref PubMed Google Scholar
- Madden CR, Finegold MJ, Slagle BL. Altered DNA mutation spectrum in aflatoxin b1-treated transgenic mice that express the hepatitis B virus x protein. J Virol 2002;76: 11770-11774. DOI Crossref PubMed Google Scholar
- Weidner N. Angiogenesis as a predictor of clinical outcome in cancer patients. Hum Pathol 2000;31: 403– 405. PubMed Google Scholar
- Dvorak HF, Brown IF, Detmar MA, Dvorak M. Vascular permeability factor/vascular endothelial growth factor, microvascular hypermeability, and angiogenesis. Am J Pathol 1995;146:1029–1039. PubMed Google Scholar
- Gressner AM, Weiskirchen R, Breitkopf K, Dooley S. Roles of TGF-beta in hepatic fibrosis. Front Biosci 2002;7:d793– d807. DOI Crossref PubMed Google Scholar
- Carr BI, Hayashi I, Branum EL, et al. Inhibition of DNA synthesis in rat hepatocytes by platelet-derived type beta transforming growth factor. Cancer Res 1986;46: 2330– 2334. PubMed Google Scholar
- Nakamura T, Tomita Y, Hirai R et al. Inhibitory effect of transforming growth factor-beta on DNA synthesis of adult rat hepatocytes in primary culture. Biochem Biophys Res Commun 1985;133:1042– 1050. DOI Crossref PubMed Google Scholar
- Tischer E, Gospodarowicz D, Mitchell Silva RM, Schilling Lau JK, Crisp T, Fiddes JC, Abraha JA. Vascular endothelial growth factor: a new member of the platelet-derived growth factor gene family. Biochem Biophys Res Commun 1989;165:1198-1206. DOI Crossref PubMed Google Scholar
- Tammela TM, Enholm B, Alitalo K, Paavonen K. The biology of vascular endothelial growth factors. Cardiovas Res 2005;65: 550-563. DOI Crossref PubMed Google Scholar
- Clifford RL, Deacon K, Knox AJ. Novel regulation of vascular endothelial growth factor-A (VEGF-A) by transforming growth factor β1: requirement for Smads, β - catenin, and GSK3 β. J Biol Chem 2008;283:35337– 35353. DOI Crossref PubMed Google Scholar
- Fan F, Wey JS, McCarty MF et al. Expression and function of vascular endothelial growth factor receptor-1 on human colorectal cancer cells. Oncogene 2005;24:2647– 2653. DOI Crossref PubMed Google Scholar
- Olsson A, Dimber KA, Kreuger J, et al. VEGF receptor signalling—in control of vascular function. Nat Rev Mol Cell Biol 2006;7:359– 371. DOI Crossref PubMed Google Scholar
- Ferrara N, Gerber HP, LeCoute JR. The biology of VEGF and its receptors. Nature Medicine 2003;9: 669–676. DOI Crossref PubMed Google Scholar
- Takahashi H, Shibuya M. The vascular endothelial growth factor (VEGF)/VEGF receptor system and its role under physiological and pathological conditions. Clin Sci 2005;109:227–241. DOI Crossref PubMed Google Scholar
- Levine A, Liu C, Greenberg XH PD, et al. Androgen induce the expression of vascular endothelial growth factor in human fetal prostatic fibroblasts. Endocrinology 1998; 139:4672– 4678. PubMed Google Scholar
- Jackson MW. A potential autocrine role for vascular endothelial growth factor in prostate cancer. Cancer Res 2002;62:854– 859. PubMed Google Scholar
- Fukumura D, Xavier R, Suguira T, et al. Tumor induction of VEGF promoter activity in stromal cells. Cell 1998;94:715-725. DOI Crossref PubMed Google Scholar
- Park YN, Kim YB, Yang KM, Park C. Increased expression of vascular endothelial growth factor and angiogenesis in the early stage of multistep hepatocarcinogenesis. Arch Pathol Lab Med 2000;124:1061– 1065. DOI Crossref PubMed Google Scholar
- Hsieh MC, Hsu HT, Hsiao PC, et al. Role of VEGF-C gene polymorphisms in susceptibility to hepatocellular carcinoma and its pathological development. J Clin Lab Anal 2014;28:237-244. DOI Crossref PubMed Google Scholar
- Spinzi G, Paggi S. Sorafenib in advanced hepatocellular carcinoma. N Engl J Med 2008;359:2497-2498. VEGF and TGF-β in Hepatocellular Carcinoma Saurabh Kumar Chhonker, et al. DOI Crossref PubMed Google Scholar
- Zhou L, Liu J, Luo F. Serum tumor markers for detection of hepatocellular carcinoma. World J Gastroenterol 2006;12: 1175-1181. DOI Crossref PubMed Google Scholar
- Leung DW, Carchianes G, Kuang WJ, Goeddel DV, Ferrara N. Vascular endothelial growth factor is a secreted angiogenic mitogen. Science 1989;246:1306– 1309. DOI Crossref PubMed Google Scholar
- Fox SB, Gatter KC, Harris AL. Tumor angiogenesis. J Pathol 1996;179:232–237. PubMed Google Scholar
- Jennings MT, Pietenpol JA. The role of transforming growth factor in glioma progression. J Neurooncol 1998;36:123-140. DOI Crossref PubMed Google Scholar
- Lindholm D, Castren E, Kiefer R, Zafra F, Thoenen H. Transforming growth factor-beta1 in rat brain: increase after injury and inhibition of astrocyte proliferation. J Cell Biol 1992;117: 395-400. DOI Crossref PubMed Google Scholar
- Heldin CH, Miyazono K, Dijke PT. TGF-beta signaling from cell membrane to nucleus through SMAD proteins. Nature 1997;390:465-471. DOI Crossref PubMed Google Scholar
- Roberts AB, Wakefield LM. The two faces of transforming growth factor beta in carcinogenesis. Proc Natl Acad Sci USA 2003;100:8621–8623. DOI Crossref PubMed Google Scholar
- Wang J, Shao N, Ding X, Tan B, Song Wang QN, Jia Y, Ling H, Cheng Y. Crosstalk between transforming growth factor-β signaling pathway and long non-coding RNAs in cancer. Cancer Lett 2016;370:296– 301. DOI Crossref PubMed Google Scholar
- Pardali K, Kurisaki A, Morén A, Ten Dijke P, Kardassis D, Moustakas A. Role of Smad proteins and transcription factor Sp1 in p21(Waf1/Cip1) regulation by transforming growth factor-beta. J Biol Chem 2000;275:29244–29256. DOI Crossref PubMed Google Scholar
- Seoane J, Le HV, Shen L, Anderson SA, Massagué J. Integration of Smad and forkhead pathways in the control of neuroepithelial and glioblastoma cell proliferation. Cell 2004;117:211–223. DOI Crossref PubMed Google Scholar
- Murawaki Y, Ikuta Y, Nishimura Y Koda, M, Kawasaki H. Serum markers for fibrosis and plasma transforming growth factor-beta 1 in patients with hepatocellular carcinoma in comparison with patients with liver cirrhosis, J Gastroenterol Hepatol 1996;11:443–450. DOI Crossref PubMed Google Scholar
- Elliott RL, Blobe GC. Role of transforming growth factor Beta in human. J Oncol Clin 2005;23:2078-2093. DOI Crossref PubMed Google Scholar
- Levy L, Hill CS. Alterations in components of the TGF-beta superfamily signaling pathways in human cancer. Cytokine Growth Factor Rev 2006;17: 41-58. DOI Crossref PubMed Google Scholar
- Kanzler S, Meyer E, Lohse AW, Schirmacher P, Henninger J, Galle PR, Blessing M. Hepatocellular expression of a dominant negative mutant TGF-β type II receptor accelerates chemically induced hepatocarcinogenesis. Oncogene 2001;20:5015–5024. DOI Crossref PubMed Google Scholar
- Im YH, Kim HT, Kim IY, Factor VM, Hahm KB, Anzano M, Jang JJ, Flanders K, Haines DC, Thorgeirsson SS, Sizeland A, Kim SJ. Heterozygous mice for the transforming growth factor-β type II receptor gene have increased susceptibility to hepatocellular carcinogenesis. Cancer Res 2001;61: 6665–6668. PubMed Google Scholar
- Ohgushi M, Kuroki S, Fukamachi H, O'Reilly LA, Kuida K, Strasser A, et al. Transforming growth factor beta-dependent sequential activation of Smad, Bim, and caspase-9 mediates physiological apoptosis in gastric epithelial cells. Mol Cell BioL 2005;25:10017–10028. DOI Crossref PubMed Google Scholar
- Tsushima H, Kawata S, Tamura S, Ito N, Shirai Y, Kiso S, Imai Y, Shimomukai H, Nomura Y, Matsuda Y, et al. High levels of transforming growth factor beta 1 in patients with colorectal cancer: association with disease progression. Gastroenterology 1996;110:375-382. DOI Crossref PubMed Google Scholar
- Wikstrom P, Stattin P, Franck-Lissbrant I, Damber JE, Bergh A. Transforming growth factor beta1 is associated with angiogenesis, metastasis, and poor clinical outcome in prostate cancer. Prostate 1998;37:19-29. DOI Crossref PubMed Google Scholar
- Friedman E, Gold LI, Klimstra D, Zeng ZS, Winawer S, Cohen A. High levels of transforming growth factor beta 1 correlate with disease progression in human colon cancer. Cancer Epidemiol Biomarkers Prev 1995;4:549-554. DOI Crossref PubMed Google Scholar
Tam metni okuyun
PDF'yi burada aç
PDF yükleniyor…
PDF burada görünmezse yukarıdaki indirme düğmesini kullanın.
Bu makaleye nasıl atıf yapılır
Chhonker SK, Rawat D, Koiri RK. Role of Vascular Endothelial Growth Factor and Transforming Growth Factor-β in Hepatocellular Carcinoma. Ulutas Med J. 2017;3(2):25-31. doi:10.5455/umj.20170608022309
Chhonker, S. K., Rawat, D., & Koiri, R. K. (2017). Role of Vascular Endothelial Growth Factor and Transforming Growth Factor-β in Hepatocellular Carcinoma. The Ulutas Medical Journal, 3(2), 25–31. https://doi.org/10.5455/umj.20170608022309
Chhonker, S.K., Rawat, D. and Koiri, R.K. (2017) 'Role of Vascular Endothelial Growth Factor and Transforming Growth Factor-β in Hepatocellular Carcinoma', The Ulutas Medical Journal, 3(2), pp. 25–31. doi: 10.5455/umj.20170608022309.